
LA BIOLOGIE DES RAYONNEMENTS
Après leur découverte par Röntgen en 1895, les rayons X ont été adoptés si rapidement dans le diagnostic et le traitement des maladies que les lésions dues à une exposition excessive ont presque immédiatement fait leur apparition chez les pionniers du domaine, qui n’étaient pas encore conscients des risques qu’ils encouraient (Brown, 1933). Au début, les lésions consistaient essentiellement en réactions cutanées sur les mains de ceux qui manipulaient les premiers appareils à rayons X. Une dizaine d’années plus tard, beaucoup d’autres lésions étaient signalées, y compris les premiers cancers attribués aux rayonnements (Stone, 1959).
Depuis ces premières constatations, l’étude des effets biologiques des rayonnements ionisants a constamment reçu des impulsions nouvelles du fait de leur utilisation croissante en médecine, en sciences et dans l’industrie, ainsi que dans les applications pacifiques et militaires de l’énergie nucléaire. C’est ce qui explique que les effets biologiques des rayonnements aient fait l’objet d’investigations beaucoup plus approfondies que ceux de tout autre agent extérieur. D’ailleurs, les connaissances radiobiologiques acquises ont beaucoup contribué aux actions entreprises pour protéger la santé humaine contre bien d’autres risques liés à l’environnement.
La nature des effets biologiques et les mécanismes en jeu
Energie communiquée au milieu . Contrairement aux autres formes de rayonnement, les rayonnements ionisants peuvent transmettre suffisamment d’énergie localement pour éjecter des électrons des atomes sur lesquels ils agissent. Ainsi, à mesure que les particules ionisantes heurtent de façon aléatoire des atomes et des molécules en passant à travers des cellules vivantes, elles donnent naissance à des ions et à des radicaux libres qui rompent les liaisons chimiques et provoquent d’autres transformations moléculaires qui endommagent les cellules touchées. La répartition spatiale de l’ionisation dépend du facteur de pondération du rayonnement wR (voir tableau 48.1 et figure 48.3).
Figure 48.3 Pouvoir de pénétration dans les tissus de différents rayonnements ionisants
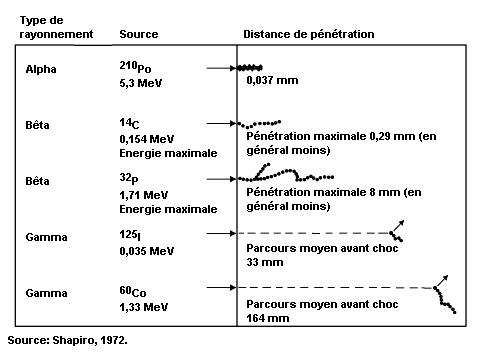
Effets sur l’ADN . Le rayonnement peut altérer toute molécule de la cellule, mais l’ADN est la cible biologique la plus critique à cause de la redondance limitée de l’information génétique qu’il contient. Une dose absorbée assez importante pour tuer une cellule moyenne en voie de division — 2 grays (Gy) — suffit pour causer des centaines de lésions dans ses molécules d’ADN (Ward, 1988). La plupart de ces lésions sont réparables, mais celles qui résultent d’un rayonnement ionisant dense (proton ou particule alpha, par exemple) sont en général moins susceptibles de réparation que celles d’un rayonnement moins ionisant (rayons X ou gamma, par exemple) (Goodhead, 1988). Par conséquent, les rayonnements à forte densité d’ionisation (c’est-à-dire à transfert linéique d’énergie (TLE) élevé) ont ordinairement une efficacité biologique relative (EBR) supérieure à celle des rayonnements à faible densité d’ionisation (à TLE peu élevé) pour la plupart des lésions (CIPR, 1991).
Effets sur les gènes . Les dommages non réparables ou mal réparés subis par l’ADN peuvent donner lieu à des mutations dont la fréquence semble croître de façon linéaire avec la dose, à environ 10–5 à 10–6 par locus et par Gy, sans qu’il existe apparemment de seuil (Committee on the Biological Effects of Ionizing Radiations (BEIR V), 1990). Pour certains experts, cette proportionnalité apparente entre le taux de mutation et la dose signifierait que le passage d’une seule particule ionisante à travers l’ADN suffit en principe pour causer une mutation (BEIR V, 1990). Chez les victimes de la catastrophe de Tchernobyl, la relation dose-effet observée pour les mutations de la glycophorine dans les cellules de moelle osseuse ressemble étroitement à celle que l’on a mise en évidence chez les survivants des bombardements atomiques (Jensen et coll., 1995).
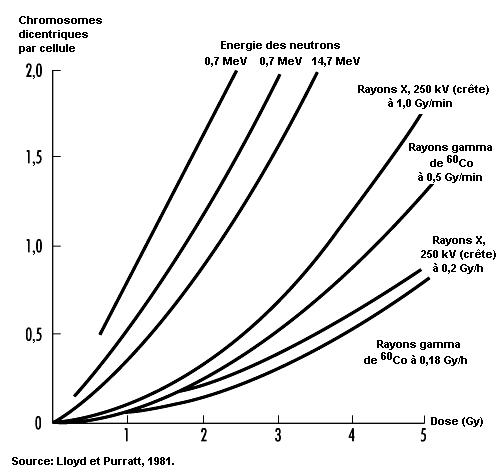
Effets sur les chromosomes . Les dommages causés par les rayonnements ionisants aux matériaux génétiques peuvent également provoquer des modifications du nombre et de la structure des chromosomes, dont on a observé que la fréquence augmentait avec la dose chez les travailleurs exposés aux rayonnements ionisants, les survivants des bombardements atomiques et d’autres personnes également exposées. La relation dose-effet correspondant aux aberrations chromosomiques des lymphocytes sanguins humains (voir figure 48.4) a été suffisamment bien caractérisée pour constituer un moyen utile de dosimétrie biologique (AIEA, 1986).
Figure 48.4 Fréquence des aberrations chromosomiques dicentriques des lymphocytes humains
en fonction de la dose, du débit de dose et de la qualité du rayonnements (in vitro)
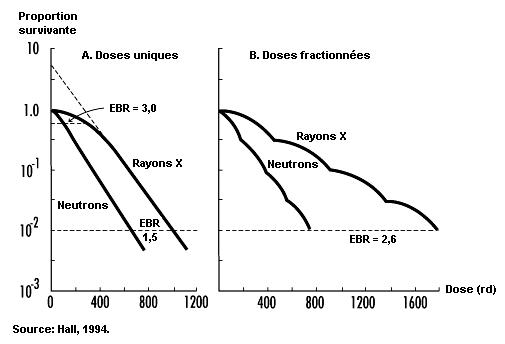
Effets sur la survie des cellules . L’inhibition de la division cellulaire compte parmi les premiers effets observés de l’irradiation. Elle se manifeste rapidement après l’exposition et varie avec la dose tant dans son degré que par sa durée (voir figure 48.5). Même si l’inhibition de la mitose est le plus souvent transitoire, les dommages que les rayonnements ionisants font subir aux gènes et aux chromosomes peuvent tuer les cellules en cours de division, qui représentent une classe très radiosensible (CIPR, 1984). Mesurée en fonction de la capacité de prolifération, la survie des cellules en cours de division tend à décroître de façon exponentielle avec l’augmentation de la dose, 1 à 2 Gy suffisant en général pour réduire de moitié le nombre de cellules survivantes (voir figure 48.6).
Figure 48.5 Inhibition mitotique, induite par rayons X, des cellules épithéliales de la cornée du rat
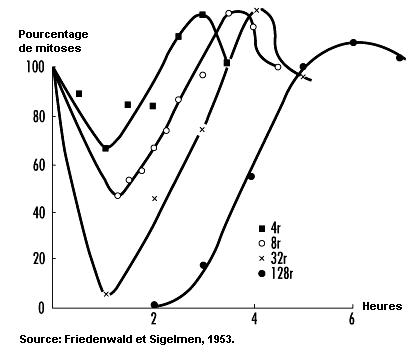
Figure 48.6 Courbes caractéristiques dose-survie de cellules de mammifères exposées à des
rayons X et à des neutrons rapides
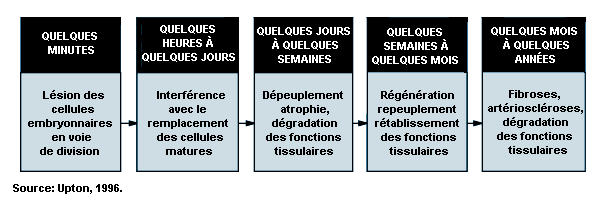
Effets sur les tissus . Les cellules matures qui ne sont pas en cours de division sont relativement radiorésistantes, contrairement aux cellules en cours de division, qui sont radiosensibles et peuvent être détruites en nombre suffisant pour causer une atrophie du tissu (voir figure 48.7). La vitesse de ce processus dépend de la dynamique de la population cellulaire dans le tissu en cause. Autrement dit, il est en général beaucoup plus lent dans les organes à régénération cellulaire lente, comme le foie et l’endothélium vasculaire, que dans les organes à régénération cellulaire rapide, comme la moelle osseuse, l’épiderme et la muqueuse intestinale (CIPR, 1984). Il convient de noter en outre que si le volume de tissu irradié est assez petit ou que la dose est accumulée d’une manière assez progressive, la prolifération compensatoire des cellules survivantes peut considérablement réduire la gravité de la lésion.
Figure 48.7 Succession caractéristique de événements dans la pathogenèse des effets
non stochastiques des rayonnements ionisants
Les manifestations cliniques des lésions
Types d’effets . Les effets des rayonnements ionisants englobent une vaste gamme de réactions très différentes les unes des autres dans leur relation dose-effet, leurs manifestations cliniques, leur succession dans le temps et les pronostics correspondants (Mettler et Upton, 1995). Par commodité, on subdivise souvent les effets en deux grandes catégories: 1) effets héréditaires , ou effets génétiques qui se manifestent chez les descendants des personnes exposées; et 2) effets somatiques , qui se manifestent chez les personnes exposées elles-mêmes. Ces derniers comprennent les effets aigus, qui apparaissent peu après l’irradiation, et les effets à long terme (ou différés), qui peuvent se manifester des mois, des années ou même des décennies plus tard.
Effets aigus . Les effets aigus des rayonnements ionisants résultent surtout de l’appauvrissement en cellules capables de reproduction dans les tissus irradiés (voir figure 48.7) et ne se manifestent qu’en présence de doses assez importantes pour détruire beaucoup de ces cellules (voir par exemple le tableau 48.3). C’est pour cette raison que l’on considère que ces effets sont de nature non stochastique ou déterministe (CIPR, 1984, 1991). Il n’en est pas de même des effets mutagènes et cancérogènes des rayonnements, considérés comme des phénomènes stochastiques résultant d’altérations moléculaires aléatoires de cellules individuelles, dont la fréquence croît en fonction linéaire de la dose, indépendamment de tout seuil (BEIR V, 1990; CIPR, 1991).
Tableau 48.3 Dose seuil approximative d'irradiation X fractionnée à visée thérapeutique pouvant causer des détriments non stochastiques cliniquement observables dans différents tissus
| Organe ou tissu | Lésion à 5 ans | Dose seuil (Gy)* | Zone irradiée (surface) | ||
| Peau | Ulcère, fibrose grave | 55 | 100 cm2 | ||
| Muqueuse buccale | Ulcère, fibrose grave | 60 | 50 cm2 | ||
| Œsophage | Ulcère, rétrécissement | 60 | 75 cm2 | ||
| Estomac | Ulcère, perforation | 45 | 100 cm2 | ||
| Intestin grêle | Ulcère, rétrécissement | 45 | 100 cm2 | ||
| Côlon | Ulcère, rétrécissement | 45 | 100 cm2 | ||
| Rectum | Ulcère, rétrécissement | 55 | 100 cm2 | ||
| Glandes salivaires | Xérostomie | 50 | 50 cm2 | ||
| Foie | Insuffisance hépatique, ascite | 35 | Organe entier | ||
| Rein | Néphrosclérose | 23 | Organe entier |
| Vessie | Ulcère, spasmes | 60 | Organe entier | ||
| Testicule | Stérilité permanente | 5-15 | Organe entier | ||
| Ovaire | Stérilité permanente | 2-3 | Organe entier | ||
| Utérus | Nécrose, perforation | >100 | Organe entier | ||
| Vagin | Ulcère, fistule | 90 | 5 cm2 | ||
| Sein (enfant) | Hypoplasie | 10 | 5 cm2 | ||
| Sein (adulte) | Atrophie, nécrose | >50 | Organe entier | ||
| Poumon | Pneumonite, fibrose | 40 | Lobe | ||
| Capillaires | Télangiectasie, fibrose | 50-60 | — | ||
| Cœur | Péricardite, pancardite | 40 | Organe entier |
| Os (enfant) | Arrêt de la croissance | 20 | 10 cm2 | ||
| Os (adulte) | Nécrose, fracture | 60 | 10 cm2 | ||
| Cartilage (enfant) | Arrêt de la croissance | 10 | Organe entier | ||
| Cartilage (adulte) | Nécrose | 60 | Organe entier | ||
| Système nerveux central (cerveau) | Nécrose | 50 | Organe entier | ||
| Moelle épinière | Nécrose, section | 50 | 5 cm2 | ||
| Œil | Panophthalmie, hémorragie | 55 | Organe entier | ||
| Cornée | Kératite | 50 | Organe entier | ||
| Cristallin | Cataracte | 5 | Organe entier | ||
| Oreille (interne) | Surdité | >60 | Organe entier |
| Thyroïde | Hypothyroïdie | 45 | Organe entier | ||
| Surrénale | Hypocorticisme | >60 | Organe entier | ||
| Hypophyse | Hypopituitarisme | 45 | Organe entier | ||
| Muscle (enfant) | Hypoplasie | 20-30 | Organe entier | ||
| Muscle (adulte) | Atrophie | >100 | Organe entier | ||
| Moelle osseuse | Hypoplasie | 2 | Organe entier | ||
| Moelle osseuse | Hypoplasie, fibrose | 20 | Localisée | ||
| Ganglion lymphatique | Atrophie | 33-45 | — | ||
| Vaisseaux lymphatiques | Sclérose | 50 | — | ||
| Fœtus | Mort | 2 | Organe entier | ||
|
* Dose provoquant des effets chez 1 à 5% des personnes exposées.
Source: Rubin et Casarett, 1972. |
|||||
Les lésions aiguës, qui étaient courantes chez les premiers travailleurs exposés aux rayonnements ionisants et les premiers malades soumis à des traitements de radiothérapie, ont pratiquement disparu par suite de l’amélioration des mesures de sécurité et des méthodes de traitement. Néanmoins, la plupart des malades traités par irradiation de nos jours subissent encore certaines lésions dans des tissus sains. De plus, des accidents graves continuent à se produire. En effet, les quelque 285 accidents déclarés (Tchernobyl non compris) survenus dans les centrales nucléaires de différents pays entre 1945 et 1987 ont provoqué l’irradiation de plus de 1 350 personnes, dont 33 ont été mortellement atteintes (Lushbaugh, Fry et Ricks, 1987). A lui seul, l’accident de Tchernobyl a libéré suffisamment de substances radioactives pour nécessiter l’évacuation de dizaines de milliers de personnes et d’animaux de la région environnante. En outre, plus de 200 sapeurs-pompiers et membres d’équipes d’urgence ont été atteints du mal des rayons et 31 en sont morts (Comité scientifique des Nations Unies pour l’étude des effets des rayonnements ionisants (UNSCEAR), 1988). On ne peut prédire avec certitude les effets à long terme des substances radioactives libérées, mais l’estimation des risques d’effets cancérogènes basée sur des modèles de relation dose-effet sans seuil (que nous examinons plus loin) donne à penser que la population de l’hémisphère septentrional pourrait enregistrer, par suite de l’accident, 30 000 décès supplémentaires par cancer au cours des 70 prochaines années, quoique le nombre de cancers supplémentaires enregistré dans chaque pays sera vraisemblablement trop petit pour être décelable sur une base épidémiologique (United States Department of Energy (USDOE), 1987).
Nettement moins catastrophiques, mais beaucoup plus nombreux que les défaillances de centrales nucléaires, les accidents causés par des sources médicales et industrielles de rayons gamma ont également fait des morts et des blessés. C’est ainsi qu’en 1987 la mise à la ferraille non contrôlée d’une source de radiothérapie au césium 137 à Goiânia, au Brésil, a entraîné l’irradiation de dizaines de personnes non informées, dont quatre sont mortes (UNSCEAR, 1993).
Un examen complet des lésions causées par les rayonnements ionisants dépasserait le cadre du présent article. Toutefois, compte tenu de l’intérêt général d’informations sur les réactions aiguës des tissus les plus radiosensibles, nous croyons utile d’en présenter une brève description dans les paragraphes suivants.
Peau . Les cellules de la couche basale de l’épiderme sont particulièrement radiosensibles. Par conséquent, une exposition rapide de la peau à une dose de 6 Sv ou plus provoque un érythème (rougeur) de la zone affectée, qui apparaît en général dans la journée qui suit, dure ordinairement quelques heures, puis est suivi, deux à quatre semaines plus tard, par une ou plusieurs vagues d’un érythème plus profond et plus prolongé, ainsi que par une dépilation (perte de poils ou de cheveux). Si la dose dépasse 10 à 20 Sv, phlyctène, nécrose et ulcération se manifestent dans les deux à quatre semaines, puis sont suivies par une fibrose du derme et du système vasculaire sous-jacent, qui peut mener à l’atrophie et à une deuxième vague d’ulcérations quelques mois ou quelques années plus tard (CIPR, 1984).
Moelle osseuse et organes lymphoïdes . Les lymphocytes sont aussi très radiosensibles: une dose de 2 à 3 Sv reçue rapidement par tout le corps peut en tuer suffisamment en quelques heures pour faire chuter la numération lymphocytaire périphérique et compromettre les réactions immunitaires (UNSCEAR, 1988). Egalement radiosensibles, les cellules hématopoïétiques de la moelle osseuse peuvent diminuer suffisamment en nombre sous l’effet d’une dose comparable pour causer une granulocytopénie et une thrombocytopénie dans les trois à cinq semaines qui suivent. Ces réductions des numérations de granulocytes et de plaquettes peuvent être assez graves après une forte irradiation pour provoquer une hémorragie ou une infection mortelle (voir tableau 48.4).
Tableau 48.4 Principales formes et caractéristiques du syndrome d'irradiation aiguë Temps écoulé après l’irradiation
| Temps écoulé après l’irradiation | Forme cérébrale (>50 Gy) | Forme gastro- intestinale (10-20 Gy) | Forme hémato- poïétique (2-10 Gy) | Forme pulmonaire (>6 Gy sur les poumons) | ||
| Premier jour |
Nausées
Vomissements Diarrhée Céphalées Désorientation Ataxie Coma Convulsions Mort |
Nausées
Vomissements Diarrhée |
Nausées
Vomissements Diarrhée |
Nausées
Vomissements |
||
| Deuxième semaine |
Nausée
Vomissements Diarrhée Fièvre Erythème Prostration Mort |
|||||
| Troisième à sixième semaine |
Faiblesse
Fatigue Anorexie Fièvre Hémorragie Dépilation Rétablis sement (?) Mort (?) |
|||||
| Deuxième à huitième mois |
Toux
Dyspnée Fièvre Douleurs thoraciques Insuffisance respiratoire (?) |
|||||
| Source: UNSCEAR, 1988. | ||||||
Intestin . Les cellules souches du revêtement épithélial de l’intestin grêle sont extrêmement radiosensibles. Une exposition aiguë à 10 Sv peut en réduire suffisamment le nombre pour dénuder les villosités intestinales en quelques jours (CIPR, 1984; UNSCEAR, 1988). La dénudation d’une importante surface de la muqueuse provoque souvent un syndrome dysentériforme fulminant pouvant rapidement évoluer vers le décès de la victime (voir tableau 48.4).
Gonades . Les spermatozoïdes matures peuvent survivre à de fortes doses (100 Sv) de rayonnements ionisants, mais les spermatogonies sont tellement radiosensibles qu’une dose de 0,15 Sv appliquée rapidement aux deux testicules suffit pour provoquer l’oligospermie et qu’une dose de 2 à 4 Sv peut entraîner une stérilité permanente. Les ovocytes sont aussi fortement radiosensibles: l’exposition rapide des deux ovaires à une dose de 1,5 à 2 Sv peut causer une stérilité temporaire, pouvant devenir permanente si la dose augmente, selon l’âge de la femme au moment de l’exposition (CIPR, 1984).
Voies respiratoires . Les poumons ne sont pas fortement radiosensibles, mais une exposition rapide à une dose de 6 à 10 Sv peut provoquer, un à trois mois plus tard, une pneumonie aiguë dans la zone exposée. Si un important volume de tissu pulmonaire est affecté, la victime peut souffrir d’insuffisance respiratoire dans les semaines suivantes ainsi que de fibrose pulmonaire et de cœur pulmonaire quelques mois ou quelques années plus tard (CIPR, 1984; UNSCEAR, 1988).
Cristallin . Les cellules de l’épithélium antérieur du cristallin, qui continuent à se diviser pendant toute la vie, sont relativement radiosensibles. Par conséquent, une exposition rapide du cristallin à une dose dépassant 1 Sv peut aboutir en quelques mois à la formation d’une opacité polaire postérieure microscopique. De même, une dose de 2 à 3 Sv reçue en une fois dans un court laps de temps ou une dose de 5,5 à 14 Sv accumulée sur une période de quelques mois peut provoquer une grave cataracte (CIPR, 1984).
Autres tissus . Par comparaison aux tissus mentionnés ci-dessus, les autres tissus de l’organisme sont en général nettement moins radiosensibles (voir, par exemple, le tableau 48.4). Toutefois, l’embryon constitue une importante exception à cet égard, comme nous le notons plus loin. Il y a également lieu de signaler que la radiosensibilité d’un tissu augmente s’il est en phase de croissance rapide (CIPR, 1984).
Radiolésions dues à une irradiation totale . L’exposition rapide d’une importante partie du corps à une dose dépassant 1 Gy peut provoquer le syndrome de radioexposition aiguë . Ce syndrome comporte diverses phases: 1) une phase prodromique initiale caractérisée par des symptômes tels que malaises, anorexie, nausées et vomissements; 2) une période de latence; 3) une deuxième phase (principale) de maladie; et enfin 4) soit le rétablissement, soit la mort (voir tableau 48.4). La phase principale de la maladie prend le plus souvent l’une des formes suivantes, selon la localisation prédominante des radiolésions: 1) forme hématologique; 2) forme gastro-intestinale; 3) forme cérébrale; ou 4) forme pulmonaire (voir tableau 48.4).
Radiolésions localisées . Contrairement aux manifestations cliniques, en général rapides et spectaculaires, du syndrome de radioexposition aiguë découlant de l’exposition de tout le corps, la réaction à une irradiation très localisée, produite par une source extérieure ou un radionucléide déposé à l’intérieur de l’organisme, tend à se manifester lentement avec peu de symptômes ou de signes extérieurs, à moins que le volume de tissus irradiés ou que la dose ne soient relativement importants (voir, par exemple, tableau 48.4).
Effets des radionucléides . Certains radionucléides, comme le tritium (3H), le carbone 14 (14C) et le césium 137 (137Cs), tendent à se répartir dans tout l’organisme, produisant une irradiation totale, tandis que d’autres radionucléides se fixent plutôt dans des organes particuliers, provoquant des lésions très localisées. Le radium et le strontium 90 (90Sr), par exemple, se fixent essentiellement dans les os, causant surtout des lésions osseuses, tandis que l’iode radioactif se concentre dans la glande thyroïde, qui est donc la première atteinte (Stannard, 1988; Mettler et Upton, 1995).
Les effets cancérogènes
Caractéristiques générales . La cancérogénicité des rayonnements ionisants, notée dès le début du siècle à cause de la fréquence du cancer de la peau et de la leucémie chez les pionniers de l’étude des radiations (Upton, 1986), a été largement démontrée depuis par l’existence d’une relation entre la dose et les excès de néoplasmes tous types confondus chez les travailleurs ayant manipulé des peintures luminescentes au radium, les mineurs en roche dure travaillant sous terre, les survivants des bombardements atomiques, les malades soumis à des traitements de radiothérapie et les animaux de laboratoire irradiés à titre expérimental (Upton, 1986; BEIR V, 1990).
Les tumeurs bénignes et malignes induites par irradiation mettent le plus souvent des années sinon des décennies à se développer et ne se distinguent en rien des tumeurs attribuables à d’autres causes. De plus, à peu d’exceptions près, il n’a été possible de les déceler qu’après l’application d’équivalents de dose relativement importants (0,5 Sv) et leur développement variait avec le type de néoplasme ainsi qu’avec l’âge et le sexe des personnes exposées (BEIR V, 1990).
Mécanismes . Les mécanismes moléculaires de la cancérogenèse due aux radiations ne sont pas encore connus dans tous leurs détails. Toutefois, l’observation d’animaux de laboratoire et de cultures de cellules a permis de constater que les rayonnements ionisants ont, selon les conditions expérimentales, des effets initiateurs, des effets promoteurs et des effets sur la progression du processus néoplasique (BEIR V, 1990). Leurs effets cancérogènes semblent également comprendre l’activation d’oncogènes ou encore l’inactivation ou la perte d’antioncogènes dans beaucoup sinon la totalité des cas. De plus, ces effets ressemblent énormément à ceux des agents cancérogènes chimiques en ce qu’ils sont modifiables par des hormones, des variables nutritionnelles et d’autres facteurs modificateurs (BEIR V, 1990). Ils peuvent en outre s’ajouter ou s’opposer à ceux des agents cancérogènes chimiques ou agir en synergie avec eux, selon les composés et les conditions d’exposition (UNSCEAR, 1982, 1986).
Relation dose-effet . Les données existantes ne suffisent ni à décrire sans ambiguïté la relation dose-incidence pour un type quelconque de néoplasme ni à définir le laps de temps, après l’irradiation, pendant lequel le risque de développement d’une tumeur demeure élevé dans une population exposée. Les risques attribuables à une irradiation de faible niveau ne peuvent donc être estimés que par extrapolation, sur la base de modèles comportant des hypothèses au sujet de ces paramètres (BEIR V, 1990). Parmi les différents modèles dose-effet utilisés pour estimer les risques d’une irradiation de faible niveau, celui qui a été jugé le mieux ajusté aux données existantes a la formule suivante :
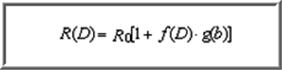
où R0 représente le risque naturel, selon l’âge, de mourir d’un type donné de cancer; D, la dose reçue; f(D) , une fonction de la dose qui est linéaire quadratique dans le cas de la leucémie et linéaire pour les autres types de cancers; et g(b) , une fonction de risque dépendant d’autres paramètres tels que le sexe, l’âge au moment de l’exposition et le temps écoulé depuis celle-ci (BEIR V, 1990).
De tels modèles sans seuil ont été appliqués aux données épidémiologiques des survivants de Nagasaki et d’Hiroshima et d’autres populations irradiées pour calculer le risque d’apparition de différentes formes de cancers radio-induits (voir, par exemple, tableau 48.5). Il faut cependant interpréter ces estimations avec prudence si l’on cherche à prédire le risque de cancer attribuable à de faibles doses ou à des doses accumulées pendant des semaines, des mois ou des années, parce que les expériences effectuées sur des animaux de laboratoire ont établi que le pouvoir cancérogène des rayons X et gamma peut diminuer d’un ordre de grandeur lorsque l’exposition est répartie sur une longue période. En fait, comme d’autres sources l’expliquent (BEIR V, 1990), les données disponibles n’excluent pas la possibilité de l’existence d’un seuil d’équivalent de dose de l’ordre du millisievert (mSv), en deçà duquel le pouvoir cancérogène d’un rayonnement serait nul.
Tableau 48.5 Estimation du risque vie entière de cancer attribuable à une irradiation aiguë de 0,1 Sv
| Type ou site du cancer | Excès de décès par cancer pour 100 000 habitants | |||
| Nombre | Pourcentage* | |||
| Estomac | 110 | 18 | ||
| Poumon | 85 | 3 | ||
| Côlon | 85 | 5 | ||
| Leucémie (sauf leucémie lymphoïde chronique (LLC)) | 50 | 10 | ||
| Vessie | 30 | 5 | ||
| 10 | ||||
| Sein | 20 | 1 | ||
| Foie | 15 | 8 | ||
| Gonades | 10 | 2 | ||
| Thyroïde | 8 | 8 | ||
| Ostéosarcome | 5 | 5 | ||
| Peau | 2 | 2 | ||
| Autres | 50 | 1 | ||
| Total | 500 | 2 | ||
| * Pourcentage d’augmentation par rapport au taux de mortalité «naturel» d’une population non irradiée. Source: CIPR, 1991. | ||||
Il y a également lieu de noter que les tableaux présentés reposent sur les moyennes d’une population et ne s’appliquent donc pas nécessairement à un individu donné. Autrement dit, la prédisposition à certains types de cancer (comme ceux de la thyroïde et du sein) est sensiblement plus élevée chez les enfants que chez les adultes. De plus, elle augmente chez les personnes atteintes de certains troubles héréditaires, comme le rétinoblastome et la carcinome nævoïde basocellulaire (UNSCEAR, 1988, 1994; BEIR V, 1990). En dépit de ces différences de susceptibilité, certains experts ont proposé d’utiliser ces estimations fondées sur les moyennes dans des affaires d’indemnisation, comme base de calcul de la probabilité qu’un cancer chez une personne irradiée ait été causé par l’irradiation en question (NIH, 1985).
Risque des faibles doses . Les études épidémiologiques entreprises jusqu’ici pour vérifier si le risque de cancer attribuable à une exposition de faible niveau varie avec la dose selon le modèle présenté ci-dessus n’ont pas été concluantes. Les populations des régions où le rayonnement naturel est élevé ne manifestent aucune augmentation des taux de cancer que l’on puisse lui attribuer avec certitude (BEIR V, 1990; UNSCEAR, 1994). En fait, quelques études ont même suggéré l’existence d’une relation inverse entre le niveau du rayonnement naturel et les taux de cancer, relation que certains observateurs ont interprétée comme preuve des effets bénéfiques (ou des propriétés de l’effet ormesis) de l’irradiation de faible intensité par suite des réactions adaptatives de certains systèmes cellulaires (UNSCEAR, 1994). La relation inverse est cependant d’une validité douteuse, puisqu’elle n’a pas persisté lorsqu’on a tenu compte des effets des variables de confusion (BEIR V, 1990). De même, chez les travailleurs exposés aux rayonnements — sauf en ce qui concerne quelques cohortes de mineurs en roche dure travaillant sous terre (BEIR V, 1994; Lubin et coll., 1994) —, on ne signale pas aujourd’hui d’excédent de cancer, à part la leucémie (UNSCEAR, 1994), grâce aux mesures de radioprotection prises. De plus, les taux de leucémie chez ces travailleurs concordent avec les estimations présentées ci-dessus (CIRC, 1994). Bref, les données dont on dispose à l’heure actuelle sont compatibles avec ces estimations (voir tableau 48.5), selon lesquelles moins de 3% des cancers de l’ensemble de la population sont attribuables au rayonnement naturel (BEIR V, 1990; CIRC, 1994), quoiqu’un pourcentage pouvant atteindre 10% des cancers du poumon puisse être imputable au radon présent dans les locaux habités (BEIR V, 1990; Lubin et coll., 1994).
On a pu constater que les retombées hautement radioactives d’un essai nucléaire réalisé dans les îles de Bikini en 1954 ont causé une augmentation liée à la dose de la fréquence des cancers de la thyroïde chez des habitants des îles Marshall qui avaient subi une forte irradiation de la thyroïde lorsqu’ils étaient enfants (Robbins et Adams, 1989). De même, on a signalé que les enfants des régions de la Biélorussie et de l’Ukraine contaminées par l’accident de Tchernobyl présentaient une incidence accrue de cancer de la thyroïde (Prisyazhiuk et coll., 1991; Kasakov, Demidchik et Astakhova, 1992). Ces résultats cependant divergent de ceux obtenus dans le cadre du Programme international sur les effets de l’accident de Tchernobyl sur la santé (International Programme on the Health Effects of the Chernobyl Accident (IPHECA)), selon lequel aucun excès de nodules thyroïdiens bénins ou malins n’était observé chez les enfants vivant dans les zones fortement contaminées situées aux alentours de Tchernobyl (Mettler et coll., 1992). La raison de cette divergence reste à élucider et l’hypothèse selon laquelle l’excédent de cancers signalé serait seulement imputable à une surveillance renforcée doit encore être examinée. Il y a lieu de noter, à cet égard, que chez les enfants du sud-ouest de l’Utah et du Nevada qui avaient été exposés aux retombées des essais nucléaires menés dans le Nevada dans les années cinquante, il y avait une fréquence accrue de tous les genres de cancers de la thyroïde (Kerber et coll., 1993) et que la prévalence de la leucémie aiguë semble avoir été élevée parmi les enfants de ces régions décédés entre 1952 et 1957, période de plus forte exposition aux retombées (Stevens et coll., 1990).
Certains auteurs ont également suggéré que les excès de leucémie observés parmi les enfants vivant au voisinage des centrales nucléaires au Royaume-Uni pourraient être dus aux rejets radioactifs émis par ces centrales. Pourtant, on a estimé que les rejets n’ont ajouté que moins de 2% à la dose totale de rayonnement à laquelle ces enfants ont été exposés, ce qui porte à croire que d’autres explications sont plus probables (Doll, Evans et Darby, 1994). Il est possible que les excès de leucémie observés aient fait l’objet d’une recherche étiologique insuffisante: c’est ce que suggère l’existence d’excès comparables de leucémie infantile à des endroits au Royaume-Uni qui n’ont aucune centrale nucléaire, mais qui ont récemment connu, comme les sites de telles centrales, d’importants accroissements démographiques (Kinlen, 1988; Doll, Evans et Darby, 1994). Une étude cas-témoins (Gardner et coll., 1990) a abouti à une autre hypothèse, celle que les leucémies en question puissent découler de l’exposition professionnelle des pères des enfants en cause. Toutefois, cette hypothèse est en général rejetée pour les raisons que nous examinons dans la section suivante.
Les effets héréditaires
Quoique bien documentés pour d’autres organismes vivants, les effets héréditaires de l’irradiation n’ont jamais été observés chez les humains. Ainsi, une étude intensive de plus de 76 000 enfants de survivants japonais des bombardements atomiques, qui s’est étendue sur une quarantaine d’années, n’a révélé aucun effet héréditaire des rayonnements ionisants sur cette population, tels que grossesses à issue défavorable, décès chez les nouveau-nés, tumeurs malignes, translocations chromosomiques équilibrées, aneuploïdie des chromosomes sexuels, altérations des phénotypes de protéines sériques ou érythrocytaires, changements du sexe ratio ou troubles de la croissance et du développement (Neel et coll., 1990). Par conséquent, l’estimation des risques d’effets héréditaires des rayonnements dépend dans une grande mesure de l’extrapolation des conclusions tirées de l’observation de souris et d’autres animaux de laboratoire (BEIR V, 1990; UNSCEAR, 1993).
D’après les données expérimentales et épidémiologiques disponibles, on a déduit que la dose nécessaire pour doubler le taux de mutations héréditaires dans les cellules reproductrices humaines est d’au moins 1,0 Sv (BEIR V, 1990; UNSCEAR, 1993). On estime, sur cette base, que moins de 1% de l’ensemble des maladies humaines d’origine génétique sont attribuables au rayonnement naturel (voir tableau 48.6).
Tableau 48.6 Estimations de la fréquence des effets héréditaires attribuables aux rayonnements ionisants naturels
| Type de trouble | Prévalence naturelle (par million de naissances vivantes) | Contribution des sources naturelles de rayonnement (1) (par million de naissances vivantes) (2) | |||
| Première génération | Générations d’équilibre3 | ||||
| Autosomique dominant | 180 000 | 20-100 | 300 | ||
| Lié au sexe | 400 | <1 | <15 | ||
| Récessif | 2 500 | <1 | Augmentation très lente | ||
| Chromosomique | 4 400 | <20 | Augmentation très lente | ||
| Malformations congénitales | 20 000- 30 000 | 30 | 30-300 | ||
| Autres troubles à étiologie complexe | |||||
| Cardiopathie | 600 000 | Non estimé4 | Non estimé4 | ||
| Cancer | 300 000 | Non estimé4 | Non estimé4 | ||
| Autres troubles définis | 300 000 | Non estimé4 | Non estimé4 | ||
| 1 Equivalent de ~1mSv par an, ou ~30 mSv par génération (30 ans). 2 Valeurs arrondies. 3 Après des centaines de générations, l’addition de mutations radio-induites défavorables est, en définitive, compensée par leur perte dans la population, ce qui aboutit à une forme d’«équilibre» génétique. 4 On ne dispose pas d’estimations quantitatives des risques à cause de l’incertitude liée à la composante mutationnelle des maladies en cause. Source: d’après Committee on the Biological Effects of Ionizing Radiations (BEIR V), 1990. | |||||
Comme nous l’avons mentionné plus haut, les résultats d’une étude cas-témoins (Gardner et coll., 1990) avaient permis d’avancer l’hypothèse selon laquelle le surcroît de fréquence des leucémies et des lymphomes non hodgkiniens chez les jeunes du village de Seascale résultait des effets oncogènes héréditaires de l’exposition professionnelle aux rayonnements des pères de ces enfants qui avaient travaillé à l’installation nucléaire de Sellafield. Toutefois, cette hypothèse s’est heurtée à de nombreux arguments contraires, notamment:
1. l’absence de tout excès comparable parmi les nombreux enfants nés ailleurs qu’à Seascale de pères ayant reçu à Sellafield des doses professionnelles semblables sinon supérieures (Wakeford et coll., 1994a); 2. l’absence d’excès semblables parmi les enfants français (Hill et Laplanche, 1990), canadiens (McLaughlin et coll., 1993) et écossais (Kinlen, Clarke et Balkwill, 1993) nés de pères ayant subi des expositions professionnelles comparables; 3. l’absence d’excès parmi les enfants de survivants des bombardements atomiques (Yoshimoto et coll., 1990); 4. l’absence d’excès dans les comtés des Etats-Unis où se trouvent des centrales nucléaires (Jablon, Hrubec et Boice, 1991); 5. le fait que la fréquence des mutations radio-induites qu’implique cette hypothèse est de loin plus élevée que les taux reconnus (Wakeford et coll., 1994b).
On peut donc dire, dans l’ensemble, que les données disponibles ne confirment pas l’hypothèse de l’irradiation des gonades paternelles (Doll, Evans et Darby, 1994; Little, Charles et Wakeford, 1995).
Les effets de l’irradiation prénatale
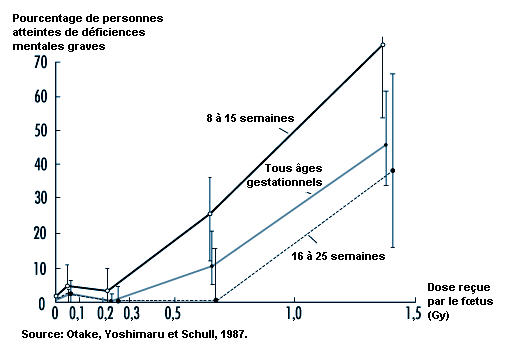
La radiosensibilité est assez élevée pendant toute la vie prénatale, mais les effets d’une dose donnée varient considérablement avec la phase de développement de l’embryon ou du fœtus au moment de l’exposition (UNSCEAR, 1986). C’est avant l’implantation que l’embryon court les plus grands risques d’être tué par l’irradiation, tandis qu’il est plus susceptible de subir des malformations et d’autres troubles du développement durant les phases critiques de l’organogenèse (voir tableau 48.7). Ce dernier fait est illustré par l’augmentation, liée à la dose, de la fréquence des déficiences mentales graves (voir figure 48.8) et par la baisse, également liée à la dose, des scores de quotient intellectuel des survivants des bombardements atomiques qui avaient été exposés entre huit et quinze semaines (et, dans une moindre mesure, entre seize et vingt-cinq semaines) (UNSCEAR, 1986, 1993).
Tableau 48.7 Principales anomalies de croissance causées par l'irradiation in utero
| Cerveau | ||||
| Anencéphalie | Porencéphalie | Microcéphalie* | ||
| Encéphalocèle | Syndrome de Down* | Medulla réduite | ||
| Atrophie cérébrale | Retard mental* | Neuroblastome | ||
| Aqueduc étroit | Hydrocéphalie* | Dilatation des ventricules* | ||
| Anomalies de la moelle épinière* | Anomalies des nerfs crâniens | |||
| Yeux | ||||
| Anophthalmie | Microphthalmie* | Microcornée* | ||
| Colobome* | Déformation de l’iris | Absence du cristallin | ||
| Absence de la rétine | Paupières ouvertes | Strabisme* | ||
| Nystagmus* | Rétinoblastome | Hypermétropie | ||
| Glaucome | Cataracte* | Cécité | ||
| Chorio-rétinite* | Albinisme partiel | Ankyloblépharon | ||
| Squelette | ||||
| Arrêt général de la croissance | Crâne de taille réduite | Malformations du crâne* | ||
| Défauts de l’ossification de la tête* | Crâne bombé | Tête étroite | ||
| Bulles crâniennes | Bec-de-lièvre* | Thorax en entonnoir | ||
| Luxation de la hanche | Spina bifida | Déformation du coccyx | ||
| Déformation des pieds | Pied bot* | Anomalies des doigts* | ||
| Valgus calcanéen | Odontogenesis imperfecta* | Exostose tibiale | ||
| Amélogenèse* | Nécrose sclérotomienne | |||
| Autres | ||||
| Situs inversus | Hydronéphrose | Urétéro-hydrose | ||
| Hydrocèle | Absence d’un rein | Anomalies gonadiques* | ||
| Cardiopathies congénitales | Malformations de la face | Maladies de l’hypophyse | ||
| Malformations des oreilles | Troubles moteurs | Nécrose des dermatomes | ||
| Nécrose des myotomes | Anomalies de la pigmentation cutanée | |||
|
* Ces anomalies ont été observées chez des humains exposés avant la naissance à d’importantes doses de rayonnement et ont, par conséquent, été provisoirement attribuées à l’irradiation.
Source: Brill et Forgotson, 1964. |
||||
Figure 48.8 Fréquence des déficiences mentales graves en fonction de la dose de rayonnement
reçue chez les survivants des bombardements atomiques, irradiés avant la naissance
La sensibilité aux effets cancérogènes des rayonnements semble aussi assez élevée pendant toute la période prénatale, si l’on en juge d’après l’association entre les cancers infantiles (y compris la leucémie) et l’exposition prénatale aux rayons X utilisés à des fins diagnostiques dans des études cas-témoins (BEIR V, 1990). Les résultats de ces études impliquent que l’irradiation prénatale pourrait multiplier le risque de leucémie et d’autres cancers infantiles par un facteur de 40 par Sv (UNSCEAR, 1986; BEIR V, 1990), ce qui est bien plus important que l’accroissement imputable à l’exposition postnatale (UNSCEAR, 1986; BEIR V, 1990). Si, paradoxalement, on n’a noté aucun excès de cancer infantile chez les survivants des bombardements atomiques qui avaient été irradiés avant leur naissance (Yoshimoto et coll., 1990), le nombre de ces survivants était trop faible pour que l’on puisse exclure un tel effet.
Résumé et conclusions
Les effets nocifs des rayonnements ionisants sur la santé humaine varient considérablement; ils vont de lésions évoluant vers un décès rapide à des effets non immédiats tels que cancers, malformations congénitales et troubles héréditaires qui pourront apparaître des mois, des années, voire des décennies plus tard. La nature, la fréquence et la gravité de ces effets dépendent de la qualité du rayonnement en cause ainsi que de la dose et des conditions d’exposition. La plupart de ces effets apparaissent après une irradiation d’un niveau assez élevé et ne se manifestent donc que chez des victimes d’accidents, des malades ayant subi des traitements de radiothérapie et d’autres personnes fortement irradiées. Par contre, on considère que la fréquence des effets génotoxiques et cancérogènes des rayonnements ionisants augmente en proportion directe de la dose sans qu’il semble exister de seuil. Par conséquent, même si l’on ne peut pas totalement exclure la possibilité qu’un tel seuil existe, on part de l’hypothèse que la fréquence des effets croît avec la dose pour tous les niveaux d’exposition. Pour la plupart des effets des rayonnements, la sensibilité des cellules exposées varie en fonction directe de leur taux de prolifération et en fonction inverse de leur degré de différenciation, l’embryon et les enfants en cours de développement étant particulièrement vulnérables.
| Algérie mon beau pays | |