
LA TOXICOLOGIE
Introduction
La toxicologie est l’étude des substances toxiques et, plus précisément, l’identification et l’évaluation quantitative des conséquences néfastes liées à l’exposition à des agents physiques, chimiques ou de toute autre nature. Comme telle, elle fait appel, tant pour ses connaissances que pour sa démarche de recherche ou ses méthodes, à la plupart des sciences biologiques fondamentales, aux disciplines médicales, à l’épidémiologie et à divers domaines de la chimie et de la physique. Elle s’étend de la recherche fondamentale sur le mécanisme d’action des agents toxiques à la mise au point et à l’interprétation de tests normalisés permettant de caractériser les propriétés toxiques de ces agents. Elle fournit à la médecine et à l’épidémiologie des informations indispensables pour comprendre l’étiologie et établir le lien entre les expositions, y compris professionnelles, et les pathologies observées. La toxicologie peut être scindée en spécialités: toxicologie clinique, toxicologie médico-légale, toxicologie fondamentale et toxicologie réglementaire, être présentée selon les organes cibles (par exemple, immunotoxicologie, toxicogénétique) ou encore selon ses objectifs (recherche, expérimentation et évaluation du risque).
Vouloir présenter de façon exhaustive la toxicologie dans cette Encyclopédie relève de la gageure. Ce chapitre ne saurait tenir lieu ni d’aide-mémoire sur cette discipline ni d’abrégé des connaissances sur les effets nocifs des divers agents toxiques. Ces informations sont plutôt à rechercher dans les bases de données continuellement mises à jour, comme nous l’expliquons dans la dernière partie du présent chapitre. Il ne tente pas non plus d’aborder des branches particulières de la toxicologie telle que la toxicologie médico-légale, mais bien de fournir des informations utilisables dans les différentes activités de cette discipline, ainsi que dans divers domaines médicaux et spécialités. Les thèmes ont été choisis en raison de leur orientation délibérément pratique et pour faciliter le renvoi à d’autres références au sein de la présente Encyclopédie.
Dans les sociétés modernes, la toxicologie est devenue un élément important pour assurer la santé tant dans le domaine environnemental que professionnel. C’est pourquoi de nombreuses organisations gouvernementales et non gouvernementales font appel à son fonds de connaissances pour évaluer les risques en milieu professionnel ou dans l’environnement en général et proposer une réglementation. Partie intégrante des stratégies de prévention, la toxicologie est d’une valeur inestimable, puisqu’elle est la source d’informations sur les risques potentiels en l’absence d’expositions humaines pertinentes. Il faut aussi rappeler que l’industrie emploie beaucoup les méthodes toxicologiques puisqu’elle y puise des renseignements utiles à la formulation de nouveaux produits ou à la conception de nouvelles molécules.
Le présent chapitre commence par cinq articles sur les principes généraux de la toxicologie, importants pour aborder la plupart des thèmes. Le premier concerne les relations entre exposition externe et dose interne. Dans la terminologie moderne, l’«exposition» fait référence aux concentrations ou quantités d’une substance auxquelles sont soumis des individus ou une population — quantités trouvées dans un volume donné d’air, d’eau ou de sol. La «dose» représente la concentration ou la quantité d’une substance présente chez un individu ou dans un organisme exposé. En santé au travail, les valeurs de référence et les lignes directrices sont souvent établies en terme d’exposition ou de limites admissibles de concentrations dans des situations spécifiques, par exemple dans l’atmosphère du lieu de travail. Ces limites d’exposition sont fondées sur la connaissance, ou parfois les hypothèses, de relations existant entre l’exposition et la dose; cependant, la dose interne n’étant pas toujours connue, de nombreuses études de santé au travail se limitent à déduire une association entre l’exposition et la réponse ou l’effet. Dans quelques cas, les normes ont été établies d’après la dose (par exemple, pour les taux admissibles de plomb dans le sang ou de mercure dans l’urine). Bien que ces mesures soient directement corrélées à la toxicité, il est encore nécessaire de recalculer les taux d’exposition correspondant à ces valeurs afin de mieux maîtriser les risques.
L’article qui suit, «Définitions et concepts», a trait aux facteurs et aux événements déterminant les relations entre exposition, dose et réponse. Les premiers de ces facteurs concernent la captation tissulaire, l’absorption et la distribution — processus qui déterminent le transport réel des substances dans le corps depuis l’environnement externe à travers les portes d’entrée telles que la peau, les poumons ou l’intestin. Ces processus sont à l’interface entre l’être humain et son environnement. Les seconds facteurs, métaboliques, objectivent la façon dont l’organisme traite les substances absorbées. Certaines d’entre elles sont transformées par les processus cellulaires du métabolisme qui peut soit renforcer leur activité biologique, soit l’atténuer.
Les concepts d’organe cible et d’effet critique ont été élaborés pour faciliter l’interprétation des données toxicologiques. Selon la dose, la durée et la voie d’exposition, et selon des facteurs intrinsèques tels que l’âge, de nombreux agents toxiques peuvent induire des effets divers au niveau des organes et des organismes. Un des principaux rôles de la toxicologie est de déterminer l’effet ou la série d’effets importants afin de prévenir l’apparition de maladies irréversibles ou invalidantes. Pour cela, il convient surtout d’identifier l’organe touché en premier ou le plus affecté par l’agent toxique: cet organe est appelé «organe cible». A l’intérieur de cet organe, il est capital de déceler le ou les événements importants objectivant une intoxication ou une lésion et permettant de mettre en évidence une altération de l’organe. Ce premier événement d’une série d’étapes physiopathologiques (l’excrétion de protéines de faible poids moléculaire représente un effet critique en néphrotoxicité), ou le premier effet potentiellement irréversible dans le processus d’une maladie (la formation d’adduits à l’ADN lors du processus de cancérogenèse), est appelé «l’effet critique». Ces concepts sont importants en santé au travail, car ils permettent de préciser le type de toxicité et de pathologie associé à une exposition spécifique; dans la plupart des cas, la diminution de l’exposition aura pour unique objectif de prévenir les effets critiques au niveau des organes cibles, et non ceux de l’ensemble des effets observés dans les différents organes.
Les deux articles suivants concernent les effets intrinsèques qui modifient les réponses à de nombreux agents toxiques. Il s’agit des déterminants génétiques, des facteurs de sensibilité ou de résistance héréditaire, de l’âge, du sexe ou encore de paramètres tels que le régime alimentaire ou la coexistence d’une maladie infectieuse. Ces facteurs peuvent aussi affecter l’exposition et la dose, en modifiant la captation tissulaire, l’absorption, la distribution et le métabolisme. Etant donné la diversité de ces facteurs parmi les travailleurs dans le monde, il est essentiel que les spécialistes de la santé au travail et les décideurs comprennent la façon dont ils font varier les réponses en fonction de la population et des individus à l’intérieur de la population. Dans les sociétés qui ont une population hétérogène, cette question est particulièrement importante. Cette disparité des populations humaines doit être prise en compte pour évaluer les risques d’exposition professionnelle et tirer des conclusions rationnelles à partir d’études expérimentales effectuées dans le cadre des recherches toxicologiques.
Cette section aborde ensuite deux aspects généraux des mécanismes d’action en toxicologie. De ce point de vue, les toxicologues modernes considèrent que tous les effets toxiques s’exercent en premier lieu au niveau cellulaire; les réponses cellulaires représentent donc les signes les plus précoces de la lutte de l’organisme vis-à-vis d’un agent toxique et font probablement partie d’une suite d’événements qui va de la lésion initiale jusqu’à la mort cellulaire. La lésion cellulaire fait appel à des processus spécifiques auxquels la cellule, plus petite unité d’organisation biologique dans un organe, a recours pour répondre à l’atteinte. Ces réponses impliquent des modifications dans le fonctionnement des processus cellulaires, en particulier au niveau de la membrane dont on connaît les rôles d’absorption, de sécrétion et d’excrétion des substances, de la synthèse protéique à partir d’acides aminés et du renouvellement des composants cellulaires. Ces réponses peuvent être communes à toutes les cellules endommagées, ou être spécifiques à des types cellulaires particuliers de certains organes. La mort cellulaire est la destruction des cellules dans un système organique, par suite d’une lésion cellulaire irréversible ou non compensée. Elle peut survenir lors d’une intoxication aiguë, comme dans le cas des agents toxiques agissant sur le transfert d’oxygène, ou être la conséquence d’une intoxication chronique. Elle peut être suivie d’une régénération dans certains organes, bien que cette prolifération puisse, dans certaines conditions, être considérée comme une réponse toxique. Même en l’absence de mort cellulaire, une lésion répétée peut induire un stress au niveau d’un organe susceptible d’altérer ses fonctions et son devenir.
Le présent chapitre traite ensuite de domaines plus spécifiques, regroupés selon les catégories suivantes: mécanismes, méthodologies, réglementation et évaluation du risque. Les articles portant sur les mécanismes mettent l’accent principalement sur les systèmes cibles plutôt que sur les organes. Cette présentation est à l’image de la pratique de la médecine et de la toxicologie modernes, qui étudient les systèmes plutôt que les organes isolés. Ainsi, les commentaires sur la toxicogénétique ne concernent pas uniquement les effets toxiques des agents sur un organe spécifique, mais bien le matériel génétique en tant que cible de l’action toxique. De même, l’article sur l’immunotoxicologie examine les divers organes et cellules du système immunitaire en tant que cibles vis-à-vis des agents toxiques. Les articles méthodologiques se veulent avant tout opérationnels; ils décrivent les méthodes qu’on emploie actuellement dans de nombreux pays pour identifier les risques, ou la manière dont on élabore l’information sur les propriétés biologiques des agents toxiques.
Le chapitre se poursuit par cinq articles relatifs à l’application de la toxicologie sur le plan réglementaire et décisionnel, depuis l’identification du risque jusqu’à son évaluation. Les procédures actuellement suivies dans différents pays y sont présentées, de même que celles du Centre international de recherche sur le cancer (CIRC). Ces articles devraient permettre au lecteur de comprendre comment, à partir de l’information tirée des tests toxicologiques associés à des déductions mécanistiques et fondamentales, l’on parvient à une information quantitative qui sert ensuite à établir les niveaux d’exposition et à d’autres approches permettant de maîtriser les risques sur le lieu de travail et dans l’environnement en général.
D’autres chapitres de la présente Encyclopédie renseignent sur les bases de données concernant la toxicologie. Ces bases fournissent aux spécialistes de la santé au travail, aux travailleurs et aux employeurs une information actuelle sur la toxicologie et l’évaluation des agents toxiques par des organismes nationaux et internationaux.
Le présent chapitre porte sur la toxicologie dans ses relations avec la sécurité et la santé au travail. Pour cette raison, la toxicologie clinique et la toxicologie médico-légale n’y sont pas expressément abordées. De nombreux principes et de nombreuses démarches semblables à ceux qui y sont décrits sont utilisés dans ces sous-disciplines de la même façon qu’en santé environnementale. Ils sont également applicables pour évaluer l’impact des agents toxiques sur les populations autres qu’humaines, préoccupation majeure des politiques environnementales dans de nombreux pays. On a tenté, dans ce chapitre, de présenter les points de vue et les expériences des experts et des praticiens de tous les secteurs dans de nombreux pays; cependant, le lecteur pourra noter un certain parti pris envers les scientifiques universitaires du monde développé. Bien que l’éditeur et ses collaborateurs soient convaincus que les principes et la pratique de la toxicologie sont internationaux, les préjugés culturels et le caractère restreint de l’expérience pourront paraître évidents dans ce chapitre. L’éditeur espère que les lecteurs de cette Encyclopédie profiteront de ses mises à jour pour conférer à cet ouvrage la perspective le plus large possible et contribuer à son enrichissement permanent.
LES PRINCIPES GÉNÉRAUX DE LA TOXICOLOGIE
DÉFINITIONS ET CONCEPTS
L’exposition, la dose et la réponse
La toxicité est la capacité intrinsèque d’un agent chimique à avoir un effet nocif sur un organisme.
Le terme xénobiotique désigne une «substance étrangère», c’est-à-dire extérieure à l’organisme, par opposition aux composants endogènes. Les xénobiotiques comprennent les médicaments, les produits chimiques industriels, les poisons naturels et les polluants environnementaux.
Un danger représente une toxicité potentielle pouvant survenir dans un cadre ou une situation déterminés.
Un risque est la probabilité d’apparition d’un effet nocif spécifique. Il est souvent exprimé en pourcentage de cas dans une population donnée pour une durée déterminée. Une évaluation du risque peut être faite à partir de cas réels ou par projection de cas futurs, basée sur des extrapolations.
L’évaluation de la toxicité, de même que la classification de la toxicité, peuvent être utilisées dans un but réglementaire. Il s’agit d’une classification arbitraire des doses ou des niveaux d’exposition («très toxique», «extrêmement toxique», «modérément toxique», etc.) à l’origine d’effets toxiques qui permet de répertorier les produits exerçant une toxicité aiguë. La classification de la toxicité permet de regrouper les produits chimiques dans des catégories générales selon leur effet toxique essentiel, par exemple les allergènes, les neurotoxiques, les cancérogènes, etc. Elle peut avoir une valeur administrative d’avertissement et d’information.
La relation dose-effet est la relation entre la dose et l’effet à l’échelle de l’individu. L’augmentation de la dose peut accroître l’intensité ou la sévérité d’un effet. Une courbe dose-effet peut être tracée pour l’ensemble de l’organisme, la cellule ou la molécule cible. Certains effets toxiques, comme la mort ou le développement d’un cancer, n’ont pas un caractère progressif: ils représentent des effets «tout ou rien».
La relation dose-réponse désigne la relation entre la dose et le pourcentage d’individus présentant un effet spécifique. Lorsque la dose augmente, un plus grand nombre d’individus sont affectés dans la population exposée.
Il est essentiel pour la toxicologie d’établir les relations dose-effet et dose-réponse. En médecine (épidémiologie), le critère de relation causale souvent employé entre un agent et une pathologie repose sur la proportionnalité entre la dose et les effets ou réponses observés.
Plusieurs courbes dose-réponse peuvent être tracées pour un même produit chimique — une par type d’effet. La courbe dose-réponse pour la plupart des effets toxiques (quand ils sont étudiés dans une population importante) a une forme sigmoïde. On observe généralement une zone de doses faibles où aucune réponse ne peut être détectée; avec l’augmentation de la dose, la réponse suit une courbe ascendante pour atteindre généralement un plateau à 100% de réponses. La courbe dose-réponse reflète les variations interindividuelles dans une population. La pente de la courbe varie d’un produit chimique à l’autre et selon le type d’effet. Dans le cas de certains produits chimiques présentant des effets spécifiques (cancérogènes, initiateurs, mutagènes), la courbe dose-réponse peut être linéaire pour une gamme de doses donnée dès la dose zéro. Cela signifie qu’il n’existe aucun seuil pour ces substances et que des doses mêmes faibles font encourir un risque. Au-delà de cette gamme de dose, le risque peut passer à un taux plus important que le taux linéaire.
Les variations d’exposition en cours de journée ou la durée totale d’exposition au cours d’une vie peuvent être aussi importantes pour le résultat observé que la dose moyenne ou même la dose intégrée. Des pics élevés d’exposition peuvent être plus dangereux qu’une exposition plus régulière. C’est le cas avec certains solvants organiques. Par ailleurs, pour certains cancérogènes, il a été démontré expérimentalement qu’à dose totale identique, le fractionnement en plusieurs expositions a une incidence accrue sur l’apparition de tumeurs.
La dose est souvent exprimée en tant que quantité (mg/kg de poids corporel) de xénobiotique ayant pénétré l’organisme. Elle peut être exprimée de différentes manières (plus ou moins informatives): dose d’exposition, concentration dans l’air d’un polluant inhalé durant une certaine période (huit heures en général en hygiène du travail); dose retenue ou absorbée (également appelée en hygiène du travail charge corporelle) qui est la quantité présente dans l’organisme à un moment donné pendant ou après une exposition. La dose tissulaire est la quantité de substance dans un tissu spécifique et la dose cible est la quantité de substance (généralement un métabolite) liée à la molécule critique. La dose cible est la quantité de produit chimique (en mg) fixée par mg de macromolécule spécifique dans un tissu. Pour utiliser ce concept, il faut disposer d’informations sur le mécanisme d’action au niveau moléculaire. La dose cible est associée plus précisément à l’effet toxique. La dose d’exposition ou la charge corporelle, plus facilement disponibles, sont liées de manière moins précise à l’effet toxique.
La notion de dose comporte souvent un paramètre temporel, même s’il n’est pas toujours exprimé. La dose théorique selon la loi de Haber est D = ct, où D est la dose, c la concentration du xénobiotique dans l’air et t la durée d’exposition à un produit chimique. Au niveau de l’organe cible ou au niveau moléculaire, on peut dire qu’il s’agit de la quantité fixée par mg de tissu ou de molécule pour un temps donné. La prise en compte du temps est généralement plus importante pour comprendre les expositions répétées et les effets chroniques que pour les expositions uniques et les effets aigus.
Les effets additifs sont le résultat d’une exposition combinée à plusieurs produits chimiques, où les toxicités particulières sont simplement additionnées les unes aux autres (1+1 = 2). Lorsque les produits chimiques agissent selon le même mécanisme, on peut présumer qu’ils auront un effet additif, mais il n’en va pas toujours de même dans la réalité. Ainsi, il peut arriver que l’interaction entre des produits chimiques aboutisse à une inhibition (antagonisme), l’effet observé étant plus faible que celui attendu par addition des effets des produits chimiques individuels (1+1<2). Inversement, la combinaison de produits chimiques peut produire un effet plus prononcé que celui attendu par simple addition (réponse augmentée chez les individus ou augmentation de la fréquence des réponses parmi une population) (synergie) (1+1>2).
Le temps de latence est le temps qui s’écoule entre une première exposition et l’apparition d’un effet ou d’une réponse décelables. Ce terme est souvent employé pour les effets cancérogènes, où les tumeurs apparaissent longtemps après le début de l’exposition et quelquefois bien après son arrêt.
Une dose seuil est le niveau de dose en dessous duquel aucun effet observable ne survient. Il existe des seuils pour certains effets, notamment les effets toxiques aigus, mais non pour d’autres, par exemple pour les effets cancérogènes (initiateurs formant des adduits à l’ADN). Une simple absence de réponse dans une population donnée ne saurait cependant être interprétée comme la preuve de l’existence d’un seuil. Elle peut être due à un simple phénomène statistique: un effet toxique ne se produisant qu’à faible fréquence pourra ne pas être décelé dans une petite population.
La DL50 (dose létale 50) est la dose qui entraîne le décès de la moitié du lot d’animaux de laboratoire soumis au toxique étudié. Elle est souvent employée dans la littérature classique comme une mesure de la toxicité aiguë des produits chimiques. Plus la DL50 est élevée, plus la toxicité aiguë est faible. Un produit chimique très toxique (avec une faible DL50) est dit violent. Il n’existe pas nécessairement de corrélation entre la toxicité aiguë et la toxicité chronique. La DE50 (dose efficace) est la dose responsable d’un effet spécifique autre que la létalité chez 50% des animaux.
La valeur NOEL (NOAEL) (No Observed (Adverse) Effect Level) correspond à la dose à laquelle aucun effet (nocif) n’est observé, ou encore la plus forte dose n’entraînant aucun effet toxique. Pour établir une valeur NOEL, il faut disposer de nombreuses doses dans une population importante mais aussi d’autres informations pour s’assurer que l’absence de réponse n’est pas simplement le résultat d’un phénomène statistique. La valeur LOEL (Low Observed Effect Level) correspond à la dose efficace la plus faible sur une courbe dose-réponse, ou à la plus faible dose provoquant un effet.
Un facteur de sécurité est un chiffre formel et arbitraire par lequel on divise les valeurs NOEL ou LOEL obtenues expérimentalement pour définir une dose admissible chez l’humain. Ce facteur, souvent employé en toxicologie alimentaire mais aussi en toxicologie professionnelle, peut servir à extrapoler des données issues de petites populations à des populations plus importantes. Les facteurs de sécurité varient de 100 à 103. On considère qu’un facteur de sécurité de deux suffit à protéger d’un effet peu sévère (par exemple, une irritation), alors que pour tous les effets très sévères (par exemple, un cancer), on applique un facteur pouvant aller jusqu’à 1 000. L’expression facteur de sécurité pourrait fort bien être remplacée par celle de facteur de protection ou, encore, facteur d’incertitude, notion qui reflète en effet mieux l’incertitude scientifique quant à savoir si des données dose-réponse concernant un produit chimique particulier, un effet toxique ou une condition d’exposition peuvent être extrapolées de l’animal à l’espèce humaine.
Les extrapolations sont des estimations théoriques qualitatives ou quantitatives de toxicité (extrapolation d’un risque) obtenues par déduction de données d’une espèce à l’autre, ou d’un ensemble de données dose-réponse obtenues dans une zone de doses élevées à des zones de dose-réponse pour lesquelles il n’existe pas de données. Elles permettent de prévoir une réponse toxique en dehors du champ d’observation. On les établit à partir de modèles mathématiques basés sur la connaissance du devenir d’un produit chimique dans l’organisme (modèle toxicocinétique) ou sur la probabilité statistique de la survenue d’un mécanisme biologique (modèle biologique ou mécanistique). Certains organismes nationaux ont mis au point, dans un but réglementaire, des modèles d’extrapolation complexes permettant de prévoir un risque (voir commentaires sur l’évaluation du risque plus loin dans ce chapitre).
Les effets systémiques sont les effets toxiques observés dans des tissus éloignés de la voie d’absorption.
L’organe cible est l’organe principal ou l’organe le plus sensible atteint lors d’une exposition. Un même produit chimique pénétrant dans l’organisme peut atteindre des organes cibles différents selon la voie, la dose, le sexe et l’espèce. Une interaction entre produits chimiques, ou entre produits chimiques et d’autres facteurs, peut également affecter différents organes cibles.
Les effets aigus sont des effets survenant rapidement (en général en moins de vingt-quatre heures) après une exposition limitée; ils peuvent être réversibles ou irréversibles.
Les effets chroniques surviennent après une exposition prolongée (mois, années, décennies) ou persistent une fois que l’exposition a cessé.
Une exposition aiguë est une exposition de courte durée, tandis qu’une exposition chronique est une exposition de longue durée (parfois toute la vie).
La tolérance (appelée aussi accoutumance ou mithridatisation) est le phénomène qui se produit lorsque des expositions répétées entraînent une réponse inférieure à celle que l’on observe sans prétraitement.
La captation tissulaire et la disposition
Le processus de transport
Diffusion. Pour pénétrer dans l’organisme et atteindre le site où elle exercera sa toxicité, une substance étrangère doit franchir plusieurs obstacles, y compris les cellules et leurs membranes. La plupart des substances toxiques traversent les membranes passivement par diffusion. Ainsi, les petites molécules hydrosolubles passent à travers les canaux aqueux, les molécules liposolubles pénétrant par dissolution et diffusion à travers la partie lipidique de la membrane. L’éthanol, petite molécule à la fois hydro- et liposoluble, diffuse rapidement à travers les membranes cellulaires.
Diffusion des acides et bases faibles. Les acides et bases faibles peuvent facilement traverser les membranes sous leur forme non ionisée liposoluble, alors que les formes ionisées trop polaires ne le peuvent pas. Le degré d’ionisation de ces substances dépend du pH. S’il existe un gradient de pH de part et d’autre d’une membrane, elles s’accumuleront d’un seul côté. L’excrétion urinaire des acides et des bases faibles est fortement dépendante du pH urinaire. Le pH fœtal ou embryonnaire est un peu plus élevé que le pH maternel, ce qui explique la tendance des acides faibles à s’accumuler dans le fœtus ou l’embryon.
Diffusion facilitée. Le passage d’une substance peut être facilité par l’existence de transporteurs membranaires. La diffusion facilitée est comparable à un processus enzymatique dans la mesure où elle est sous la dépendance d’une protéine fortement sélective et saturable. D’autres substances peuvent inhiber le transport facilité des xénobiotiques.
Transport actif. Certaines substances sont activement transportées à travers les membranes cellulaires. Ce transport s’effectue par l’intermédaire de protéines porteuses selon un processus analogue à celui des enzymes. Le transport actif s’apparente à la diffusion facilitée, mais il peut se produire contre un gradient de concentration. Il requiert un apport d’énergie et peut être bloqué par un inhibiteur métabolique. La plupart des polluants environnementaux ne sont pas transportés de manière active. La sécrétion et la réabsorption actives au niveau tubulaire rénal des métabolites acides constituent une exception.
Phagocytose. Il s’agit d’un processus par lequel des cellules spécialisées comme les macrophages absorbent des particules en vue de les dégrader. Ce processus de transport est important, par exemple pour l’élimination de particules au niveau des alvéoles pulmonaires.
Flux de masse. Les substances sont aussi transportées dans l’organisme avec le flux de l’air, ou par le flux sanguin, lymphatique ou urinaire.
Filtration. L’eau traverse les pores endothéliaux sous l’influence de la pression hydrostatique ou osmotique. Tout soluté de faible poids moléculaire sera filtré en même temps que l’eau. Une partie de la filtration se fait au niveau du lit capillaire dans tous les tissus; elle est particulièrement importante pour la formation de l’urine primaire dans les glomérules rénaux.
L’absorption
L’absorption est l’incorporation d’une substance par l’organisme. Ce terme comprend habituellement non seulement le passage à travers la barrière tissulaire, mais aussi le transport ultérieur vers la circulation sanguine.
Absorption pulmonaire. Les poumons constituent la voie essentielle de dépôt et d’absorption des petites particules aériennes, des gaz, des vapeurs et des aérosols. Dans le cas des gaz et des vapeurs très hydrosolubles, l’incorporation se fait pour l’essentiel au niveau du nez et de l’arbre respiratoire, alors que pour les substances moins hydrosolubles elle s’effectue surtout dans les alvéoles pulmonaires. Les alvéoles ont une surface très importante (environ 100 m2 chez l’humain). De plus, la barrière de diffusion est extrêmement mince puisqu’elle est constituée de deux couches cellulaires fines formant un espace de l’ordre de quelques microns entre l’air alvéolaire et la circulation sanguine systémique. Les poumons sont donc très efficaces non seulement pour les échanges oxygène et gaz carbonique, mais aussi pour les autres gaz et vapeurs. En général, la diffusion à travers la paroi alvéolaire est si rapide qu’elle ne limite pas le transport. Le taux d’absorption dépend par contre du flux (ventilation pulmonaire, débit cardiaque) et de la solubilité (coefficient de partage sang:air). Un autre facteur important est l’élimination métabolique. L’importance relative de ces facteurs sur l’absorption pulmonaire varie beaucoup selon les substances. L’activité physique entraîne une augmentation de la ventilation pulmonaire et du débit cardiaque, ainsi qu’une diminution du flux sanguin hépatique (et, partant, du taux de biotransformation). Pour beaucoup de substances inhalées, cela se traduit par une augmentation marquée de l’absorption pulmonaire.
Absorption percutanée. La peau est une barrière très efficace. A côté de son rôle thermorégulateur, elle est conçue pour protéger l’organisme contre les micro-organismes, le rayonnement ultraviolet et autres agents nocifs et éviter une perte d’eau excessive. La distance de diffusion dans le derme est de l’ordre de quelques dixièmes de millimètres. De plus, la couche de kératine présente une très grande résistance à la diffusion pour la plupart des substances. Néanmoins, en présence de substances liposolubles très toxiques telles que les insecticides organophosphorés ou les solvants organiques, on peut observer une absorption dermique considérable pouvant être à l’origine d’une intoxication. Dans le cas de substances liquides, l’absorption est notable. L’absorption percutanée de vapeurs peut être importante pour les solvants présentant une pression de vapeur très basse et une forte affinité pour l’eau et la peau.
Absorption gastro-intestinale. Elle survient par ingestion accidentelle ou volontaire. Les plus grosses particules inhalées et déposées dans l’appareil respiratoire peuvent être avalées après transport mucociliaire vers le pharynx. En pratique, toutes les substances solubles sont efficacement absorbées dans l’appareil gastro-intestinal. Le pH acide de l’intestin facilite l’absorption de certains toxiques, les métaux par exemple.
Autres voies. En toxicologie expérimentale, on utilise pour des raisons de commodité d’autres voies d’administration, alors qu’elles sont rares et non pertinentes en milieu professionnel: les injections intraveineuses (iv), sous-cutanées (sc), intrapéritonéales (ip) et intramusculaires (im). D’une façon générale, ces voies parentérales permettent une absorption plus rapide et plus complète des substances, surtout dans le cas de la voie intraveineuse. On obtient alors des pics de concentration de courte durée, mais élevés, à l’origine d’une plus forte toxicité de la dose administrée.
La distribution
La distribution d’une substance dans l’organisme est un processus dynamique dépendant des vitesses de captation tissulaire et d’élimination, du flux sanguin vers les différents tissus et de l’affinité de ces derniers pour la substance. Les petites molécules hydrosolubles, non ionisées, les cations monovalents et la plupart des anions diffusent facilement et finissent par se répartir de façon relativement régulière dans l’organisme.
Volume de distribution. Il s’agit de la quantité d’une substance dans l’organisme, divisée par la concentration sanguine, plasmatique ou sérique à un moment donné. Cette valeur n’a pas de sens en termes de volume physique, de nombreuses substances n’étant pas distribuées uniformément dans l’organisme. Un volume de distribution inférieur à 1 litre par kg de poids corporel indique une distribution préférentielle dans le sang (le sérum ou le plasma), alors qu’une valeur supérieure témoigne d’une prédilection pour les tissus périphériques, par exemple le tissu adipeux pour les substances liposolubles.
Accumulation. Ce terme désigne l’accumulation d’une substance dans un tissu ou un organe à une concentration supérieure à celle présente dans le sang ou le plasma. Il peut également faire référence à une accumulation progressive dans l’organisme au cours du temps. De nombreux xénobiotiques sont fortement liposolubles et ont tendance à s’accumuler dans le tissu adipeux, alors que d’autres présentent une affinité particulière pour le tissu osseux. C’est ainsi que le calcium osseux peut s’échanger avec des cations tels que le plomb, le strontium, le baryum ou le radium, et les groupes hydroxyles osseux s’échanger avec des ions fluorure.
Barrières. Les vaisseaux sanguins au niveau du cerveau, des testicules et du placenta présentent des structures anatomiques spéciales empêchant le passage des grosses molécules telles que les protéines. Ces structures, souvent appelées barrières hémato-méningée, testiculaire et placentaire, peuvent donner l’impression erronée qu’elles empêchent le passage de toute substance quand elles ont en fait peu d’importance, voire aucune, pour les xénobiotiques qui peuvent diffuser à travers les membranes cellulaires.
Liaison sanguine. Les substances peuvent être liées aux hématies, aux composants plasmatiques, ou se trouver à l’état libre non liées dans le sang. Le monoxyde de carbone, l’arsenic, le mercure organique et le chrome hexavalent ont une forte affinité pour les hématies, alors que le mercure inorganique et le chrome trivalent montrent une prédilection pour les protéines plasmatiques. De nombreuses autres substances sont également liées aux protéines plasmatiques. Seule la fraction libre est disponible pour la filtration et la diffusion vers les organes d’élimination. Ainsi, la liaison sanguine peut faire augmenter la durée du séjour dans l’organisme et diminuer la captation tissulaire au niveau des organes cibles.
L’élimination
L’élimination est la phase qui assure la disparition d’une substance de l’organisme soit parce qu’elle est excrétée, soit parce qu’elle est transformée en d’autres produits qui ne sont plus décelables. La vitesse de disparition peut être exprimée par la constante d’élimination, la demi-vie biologique ou la clairance.
La courbe temps-concentration. La courbe de concentration dans le sang (ou le plasma) en fonction du temps est une manière pratique de décrire la captation tissulaire et le devenir d’un xénobiotique.
L’aire sous la courbe taux plasmatique-temps est l’intégrale de la concentration dans le sang (ou le plasma) au cours du temps. En l’absence de saturation métabolique et d’autres processus non linéaires, l’aire sous la courbe est proportionnelle à la quantité absorbée de substance.
La demi-vie biologique (ou demi-vie) est le temps nécessaire après la fin d’une exposition pour réduire de moitié la quantité de substance présente dans l’organisme. Comme il est souvent difficile d’évaluer la quantité totale d’une substance, on mesure sa concentration sanguine (plasmatique). La demi-vie doit être utilisée avec précaution, car elle peut varier, par exemple, selon la dose et la durée d’exposition. De plus, de nombreuses substances ont des courbes de décroissance complexes avec plusieurs demi-vies.
La biodisponibilité est la fraction d’une dose administrée pénétrant dans la circulation systémique. En l’absence de clairance présystémique, ou de métabolisme de premier passage, la fraction est égale à 1. Lors d’une exposition per os, la clairance présystémique peut être due au métabolisme au niveau du contenu gastro-intestinal, de la paroi intestinale ou du foie. Le métabolisme de premier passage réduit l’absorption systémique de la substance et accroît plutôt l’absorption des métabolites, ce qui peut modifier le type de toxicité.
La clairance est le volume de sang (plasma) complètement épuré d’une substance par unité de temps; c’est aussi le rapport entre le débit urinaire, par minute, d’un corps et sa concentration dans le plasma. Afin de la distinguer de la clairance rénale, on parle de clairance totale, métabolique ou sanguine (plasmatique).
La clairance intrinsèque est l’aptitude des enzymes endogènes à transformer une substance; elle est également exprimée en volume par unité de temps. Si la clairance intrinsèque d’un organe est plus faible que le flux sanguin, le métabolisme est dit à capacité limitée. Inversement, si la clairance intrinsèque est beaucoup plus élevée que le flux sanguin, le métabolisme est limité par le flux.
L’excrétion
L’excrétion est l’élimination de l’organisme d’une substance et de ses produits de biotransformation.
Excrétion dans l’urine et la bile. Les reins sont les organes excréteurs les plus importants. Certaines substances, en particulier les acides de poids moléculaire élevé, sont excrétées par la bile. Une fraction des substances ainsi excrétées peut être réabsorbée au niveau intestinal. Ce processus, appelé circulation entéro-hépatique, est habituel pour les substances conjuguées après hydrolyse intestinale.
Autres voies d’excrétion. Certaines substances, les solvants organiques, des produits de dégradation comme l’acétone, sont suffisamment volatiles pour qu’une fraction importante puisse être éliminée par exhalaison après leur inhalation. Les molécules hydrosolubles ou liposolubles de faible poids moléculaire sont facilement sécrétées vers le fœtus par voie placentaire, et dans le lait chez les mammifères. Chez la mère, la lactation peut être une voie d’excrétion importante du point de vue quantitatif pour les produits chimiques liposolubles. La descendance peut être secondairement exposée par l’intermédiaire de la mère pendant la grossesse et lors de la lactation. La sueur et la salive peuvent aussi servir d’émonctoire, bien que beaucoup moins important, aux composés hydrosolubles. Cependant, étant donné le volume de salive produit et absorbé, l’excrétion salivaire peut contribuer à la réabsorption d’un produit. Certains métaux, comme le mercure, sont excrétés dans les cheveux par suite de leur forte liaison aux groupes sulphydryles de la kératine.
Les modèles toxicocinétiques
Les modèles mathématiques sont des outils importants pour comprendre et décrire la captation tissulaire et la répartition des substances étrangères. La plupart des modèles sont compartimentaux, l’organisme étant représenté par un ou plusieurs compartiments. Un compartiment est un volume théorique du point de vue chimique et physique dans lequel la substance est censée se distribuer de manière homogène et instantanée. Les modèles simples sont exprimés comme une somme de termes exponentiels, alors que les plus complexes requièrent des calculs numériques sur ordinateur. Les modèles peuvent être subdivisés en deux catégories: descriptive et physiologique.
Dans les modèles descriptifs, on assure l’ajustement des données mesurées en modifiant les valeurs numériques des paramètres du modèle ou même la structure de celui-ci. La structure du modèle n’a normalement que peu de rapport avec celle de l’organisme. Ces modèles présentent l’avantage de ne nécessiter que peu d’hypothèses et aucune donnée supplémentaire; ils ont par contre l’inconvénient de n’avoir qu’une utilisation limitée pour les extrapolations.
Les modèles physiologiques sont construits à partir de données physiologiques indépendantes, anatomiques et autres. Le modèle est alors affiné et validé par comparaison avec les données expérimentales. Un des avantages des modèles physiologiques est qu’ils peuvent servir à faire des extrapolations. Par exemple, ils permettent de prédire l’influence de l’activité physique sur la captation tissulaire et la répartition des substances inhalées du fait des ajustements physiologiques connus de la ventilation et du débit cardiaque. Ces modèles requièrent malheureusement une quantité importante de données indépendantes.
La biotransformation
La biotransformation est un processus qui mène à la transformation métabolique de composés étrangers (xénobiotiques) dans l’organisme. Ce processus est souvent appelé métabolisme des xénobiotiques. En règle générale, le métabolisme convertit les xénobiotiques liposolubles en métabolites hydrosolubles, de poids moléculaire plus élevé et faciles à éliminer.
Le foie est le principal site de la biotransformation. Tous les xénobiotiques absorbés au niveau intestinal sont transportés vers le foie par un vaisseau sanguin unique, la veine porte. Si une substance étrangère est absorbée en petites quantités, elle peut être complètement métabolisée par le foie avant d’atteindre la circulation générale et les autres organes (effet de premier passage). Les xénobiotiques inhalés parviennent au foie par la circulation générale. Seule une fraction de la dose est alors métabolisée avant d’atteindre les autres organes.
Les cellules hépatiques contiennent diverses enzymes qui oxydent les xénobiotiques. Cette oxydation active généralement le composé, qui devient plus réactif que la molécule mère. Dans la plupart des cas, le métabolite oxydé est métabolisé plus complètement par d’autres enzymes lors d’une seconde phase. Ces enzymes conjuguent le métabolite avec une substance endogène, de sorte que la molécule augmente de volume et se polarise, ce qui facilite son élimination.
Les enzymes métabolisant les xénobiotiques sont également présentes dans d’autres organes tels que les poumons et les reins où elles peuvent jouer des rôles spécifiques et qualitativement importants dans le métabolisme de certains xénobiotiques. Les métabolites formés dans un organe peuvent être ensuite métabolisés à nouveau dans un second organe. Les bactéries intestinales peuvent aussi participer à la biotransformation.
Les métabolites des xénobiotiques peuvent être excrétés par les reins ou par la bile. Ils peuvent aussi être exhalés par les poumons, ou se lier à des molécules endogènes dans l’organisme.
La relation entre la biotransformation et la toxicité est complexe. La biotransformation peut être considérée comme un processus nécessaire à la survie. Elle protège l’organisme vis-à-vis d’une toxicité en empêchant les substances nocives de s’accumuler dans l’organisme. Cependant, des métabolites réactifs intermédiaires peuvent se former lors de la biotransformation, métabolites qui sont potentiellement dangereux. Ce phénomène est appelé l’activation métabolique. La biotransformation peut donc induire également une toxicité. S’ils ne sont pas conjugués, les métabolites oxydés intermédiaires peuvent se lier aux structures cellulaires et les endommager. Par exemple, la liaison d’un métabolite de xénobiotique à l’ADN peut être à l’origine d’une mutation (voir l’article «La toxicologie génétique»). Si le système de biotransformation est dépassé, il peut se produire une destruction massive de protéines essentielles ou des membranes lipidiques qui peut aboutir à la mort cellulaire (voir l’article «La lésion et la mort cellulaires»).
Le terme métabolisme est souvent employé de façon interchangeable avec celui de biotransformation. Il désigne la dégradation chimique ou les réactions de synthèse catalysées par des enzymes dans l’organisme. Les nutriments alimentaires, les composés endogènes et les xénobiotiques sont tous métabolisés dans l’organisme.
L’activation métabolique signifie qu’un composé moins réactif est converti en une molécule plus réactive. Cette conversion se produit lors des réactions de phase I.
L’inactivation métabolique renvoie au fait qu’une molécule active ou toxique est convertie en un métabolite moins actif. Ce phénomène se produit généralement lors des réactions de phase II. Dans certains cas, un métabolite inactivé peut être réactivé, par suite d’un clivage enzymatique, par exemple.
La réaction de phase I, qui constitue la première étape du métabolisme d’un xénobiotique, indique généralement que le composé est oxydé. L’oxydation crée habituellement un composé plus hydrosoluble et facilite les réactions ultérieures.
Les enzymes du cytochrome P450 constituent un groupe d’enzymes oxydant préférentiellement les xénobiotiques lors des réactions de phase I. Les différentes enzymes sont spécialisées pour la prise en charge de groupes spécifiques de xénobiotiques présentant certaines caractéristiques. Les molécules endogènes sont également des substrats pour ces enzymes. Les enzymes du cytochrome P450 sont induites par des xénobiotiques d’une manière spécifique. La connaissance d’une induction du cytochrome P450 peut renseigner utilement sur la nature des expositions antérieures (voir l’article «Les déterminants génétiques de la réponse toxique»).
La réaction de phase II, qui représente la seconde étape dans le métabolisme des xénobiotiques, signifie que le composé oxydé est conjugué (couplé) à une molécule endogène. Cette réaction se caractérise par une augmentation de l’hydrosolubilité. De nombreux métabolites conjugués sont fortement excrétés par la voie rénale.
Les transférases constituent un groupe d’enzymes catalysant les réactions de phase II. Elles conjuguent les xénobiotiques avec des composés endogènes tels que le glutathion, les acides aminés, l’acide glucuronique ou le sulfate.
Le glutathion est une molécule endogène, un tripeptide, conjugué aux xénobiotiques lors des réactions de phase II. Il est présent dans toutes les cellules (en fortes concentrations dans les cellules hépatiques) et, généralement, protège de la toxicité des xénobiotiques activés. Lorsque le glutathion est épuisé, des réactions toxiques peuvent se produire entre les métabolites actifs des xénobiotiques et les protéines, les lipides ou l’ADN.
L’induction signifie que les enzymes participant à la biotransformation sont augmentées (en activité ou en quantité) en réponse à l’exposition à un xénobiotique. Dans certains cas, l’activité peut subir plusieurs augmentations en quelques jours. L’induction est souvent équilibrée lorsque les réactions des phases I et II subissent simultanément une augmentation; il se produira alors une biotransformation plus rapide qui peut expliquer une tolérance. Au contraire, une induction déséquilibrée peut accroître la toxicité.
L’inhibition de la biotransformation peut survenir lorsque deux xénobiotiques sont métabolisés par la même enzyme. Les deux substrats entrent en compétition et, généralement, l’un des substrats l’emporte. Dans ce cas, le second substrat n’est pas métabolisé, ou l’est plus lentement. Comme pour l’induction, l’inhibition peut donc faire augmenter la toxicité ou la faire diminuer.
L’activation de l’oxygène peut être déclenchée par les métabolites de certains xénobiotiques. Ils peuvent s’auto-oxyder en produisant des espèces oxygénées activées. Ces espèces dérivées de l’oxygène, qui incluent le superoxyde, le peroxyde d’hydrogène et le radical hydroxyle, peuvent léser l’ADN, les lipides et les protéines dans les cellules. L’activation de l’oxygène intervient également dans les processus inflammatoires.
La variabilité génétique entre les individus a été constatée pour de nombreux gènes codant pour des enzymes de phase I et de phase II. Cette variabilité peut expliquer que certains individus soient plus sensibles que d’autres aux effets toxiques des xénobiotiques.
LA TOXICOCINÉTIQUE
L’organisme humain constitue un système biologique complexe avec des niveaux d’organisation variés, depuis le niveau moléculaire-cellulaire jusqu’aux tissus et organes. Il s’agit d’un système ouvert, échangeant matière et énergie avec l’environnement à travers des réactions biochimiques nombreuses en équilibre dynamique, environnement qui peut être pollué ou contaminé par divers toxiques.
La pénétration de molécules ou d’ions toxiques depuis l’environnement, général ou professionnel, dans un tel système biologique si fortement coordonné, peut perturber de manière réversible ou irréversible les processus biochimiques cellulaires normaux, ou même léser et détruire la cellule (voir l’article «La lésion et la mort cellulaires»).
La pénétration d’un toxique depuis l’environnement jusqu’aux sites où il va exercer son effet toxique dans l’organisme peut être divisé en trois phases:
1. La phase d’exposition comprend tous les processus se produisant entre les divers toxiques ou les facteurs environnementaux ayant une influence sur eux (lumière, température, humidité, etc.). Des transformations chimiques peuvent se produire, de même qu’une dégradation, une biodégradation (par les micro-organismes) ou une destruction des toxiques. 2. La phase toxicocinétique englobe l’absorption des toxiques dans l’organisme et tous les processus ultérieurs: transport par les fluides de l’organisme, distribution et accumulation dans les tissus et les organes, biotransformation en métabolites et élimination (excrétion) des toxiques ou des métabolites en dehors de l’organisme. 3. La phase toxicodynamique fait référence à l’interaction des toxiques (molécules, ions, colloïdes) avec des sites spécifiques d’action à la surface ou à l’intérieur des cellules — récepteurs — responsables de l’effet toxique ultérieur.
Nous nous intéresserons plus particulièrement aux processus toxicocinétiques qui ont lieu dans l’organisme humain après une exposition à des toxiques environnementaux.
Les molécules ou les ions toxiques présents dans l’environnement pénètrent dans l’organisme à travers la peau et les muqueuses, ou les cellules épithéliales des appareils respiratoire et gastro-intestinal, selon la voie d’entrée. Pour cela, les molécules et les ions toxiques doivent franchir les membranes cellulaires de ces systèmes biologiques ainsi que le réseau complexe des membranes se trouvant à l’intérieur de la cellule.
Tous les processus toxicocinétiques et toxicodynamiques se produisent au niveau moléculaire ou cellulaire. Ils sont commandés par un certain nombre de facteurs que l’on peut scinder en deux groupes fondamentaux:
• constitution chimique et propriétés physico-chimiques des toxiques; • structure de la cellule et, surtout, propriétés et fonction des membranes autour de la cellule et des organites internes.
Les propriétés physico-chimiques des toxiques
C’est en 1854 que le toxicologue russe E.V. Pelikan a commencé l’étude de la relation entre la structure chimique d’une substance et son activité biologique — la relation structure-activité (RSA). La structure chimique détermine directement les propriétés physico-chimiques, dont certaines sont responsables de l’activité biologique.
Pour définir la structure chimique, on a le choix entre plusieurs paramètres ou descripteurs qui peuvent être répartis selon les groupes suivants:
1. Physico-chimique :
• général — point de fusion, point d’ébullition, tension de vapeur, constante de dissociation (pKa), coefficient de partage de Nernst (P), énergie d’activation, chaleur de réaction, potentiel de réduction, etc.; • électrique — potentiel d’ionisation, constante diélectrique, moment dipôle, rapport masse/charge, etc.; • chimie quantique — charge atomique, énergie de liaison, énergie de résonance, densité électronique, réactivité moléculaire, etc.
2. Stérique: volume moléculaire, forme et surface, forme infrastructurale, réactivité moléculaire, etc. 3. Structurel: nombre de liaisons, nombre de cycles (pour les composés polycycliques), nombre de ramifications, etc.
Pour chaque toxique, il convient donc de sélectionner un ensemble de descripteurs correspondant à un mécanisme d’activité particulier. Néanmoins, du point de vue toxicocinétique, deux paramètres revêtent une importance générale pour tous les toxiques:
• le coefficient de partage de Nernst (P) établit la solubilité des molécules toxiques dans le système à deux phases octanol (huile)-eau, relié à leur lipo- ou hydrosolubilité. Ce paramètre a une influence considérable sur la distribution et l’accumulation des molécules toxiques dans l’organisme; • la constante de dissociation (pKa) définit le degré d’ionisation (dissociation électrolytique) des molécules d’un toxique en cations et anions chargés pour un pH donné. Cette constante représente le pH correspondant à 50% d’ionisation. Les molécules peuvent être lipophiles ou hydrophiles, mais les ions sont exclusivement solubles dans l’eau des fluides et des tissus de l’organisme. Connaissant le pKa, il est possible de calculer le degré d’ionisation d’une substance pour chaque pH en utilisant l’équation de Henderson-Hasselbach.
Dans le cas des aérosols et des poussières inhalées, leur toxicocinétique et leur toxicodynamique est aussi fonction de la taille des particules, de leur forme, de leur surface et de leur densité.
La structure et les propriétés des membranes
La cellule eucaryote est entourée d’une membrane cytoplasmique qui commande le transport des substances et maintient l’homéostasie cellulaire. Les organites cellulaires (noyau, mitochondrie) possèdent eux aussi une membrane. Le cytoplasme cellulaire est compartimenté par des structures membranaires intriquées, le réticulum endoplasmique et l’appareil de Golgi (endomembranes). Toutes ces membranes ont une structure semblable, mais diffèrent par leur teneur en lipides et en protéines.
Structurellement, les membranes sont constituées d’une double couche de molécules lipidiques (phospholipides, sphingolipides, cholestérol). La principale composante de la molécule de phospholipide est le glycérol dont deux groupes OH sont estérifiés par des acides gras aliphatiques de 16 à 18 atomes de carbone, le troisième groupe étant estérifié par un groupe phosphate et un composé azoté (choline, éthanolamine, sérine). Les sphingolipides quant à eux sont surtout formés de sphingosine.
La molécule lipidique est amphipathique, car elle possède une «tête» polaire hydrophile (amino-alcool, phosphate, glycérol) et une double «queue» non polaire (acides gras). La double couche lipidique est disposée de telle sorte que les têtes hydrophiles constituent la surface intérieure et extérieure de la membrane et que les queues lipophiles sont étirées vers l’intérieur de la membrane, qui contient de l’eau, divers ions et des molécules.
Des protéines et des glycoprotéines sont insérées dans la double couche lipidique (protéines intrinsèques) ou attachées à la surface de la membrane (protéines extrinsèques). Ces protéines contribuent à l’intégrité structurale de la membrane, mais elles peuvent également remplir la fonction d’enzymes, de protéines porteuses, de parois de pores ou de récepteurs.
La membrane constitue une structure dynamique qui, selon les besoins fonctionnels, peut être désagrégée et reconstruite avec une proportion différente de lipides et de protéines.
Le contrôle du transport des substances à l’intérieur et à l’extérieur de la cellule constitue l’une des fonctions fondamentales des membranes externes et internes.
Certaines molécules lipophiles passent directement à travers la double couche lipidique, les molécules hydrophiles et les ions étant transportés par les pores. Les membranes réagissent au changement de conditions en ouvrant ou en fermant des pores de diverses tailles.
Les processus et mécanismes suivants interviennent dans le transport de substances, y compris celui des toxiques, à travers les membranes:
• diffusion à travers la double couche lipidique; • diffusion à travers les pores; • transport à l’aide d’une protéine porteuse (diffusion facilitée).
Processus actifs :
• transport actif par l’intermédiaire d’une protéine porteuse; • endocytose (pinocytose).
La diffusion
Elle représente le mouvement des molécules et des ions à travers la double couche lipidique ou les pores depuis une région à forte concentration, ou à fort potentiel électrique, vers une région à faible concentration ou potentiel («gradient de concentration»). La différence de concentration ou de charge électrique est la force motrice déterminant l’intensité du flux dans les deux directions. A l’état d’équilibre, l’afflux est égal au flux sortant. La diffusion est régie par la loi de Fick, selon laquelle le taux est directement proportionnel à la surface membranaire disponible, au gradient de concentration (charge) et à un coefficient de diffusion, et inversement proportionnel à l’épaisseur de la membrane.
Les petites molécules lipophiles passent facilement à travers la couche lipidique membranaire selon le coefficient de partage de Nernst.
Les grosses molécules lipophiles, les molécules hydrosolubles et les ions utilisent les pores aqueux pour leur passage. La taille et la configuration stérique conditionnent le passage des molécules. Pour les ions, outre la taille, le type de charge est déterminant. Les protéines constitutives de la paroi des pores peuvent acquérir une charge positive ou négative. Les pores étroits sont sélectifs — les ligands chargés négativement permettant le seul passage des cations, les ligands chargés positivement uniquement celui des anions. Lorsque le diamètre du pore augmente, le flux hydrodynamique est dominant et permet le libre passage des ions et des molécules, selon la loi de Poiseuille. La filtration est une conséquence du gradient osmotique. Dans certains cas, les ions peuvent pénétrer par l’intermédiaire de molécules spécifiques complexes — les ionophores — produits par des micro-organismes et présentant des effets antibiotiques (nonactine, valinomycine, gramicidine, etc.).
La diffusion facilitée ou catalysée
Ce type de diffusion requiert la présence d’une molécule porteuse dans la membrane, généralement de nature protéique (perméase). La molécule porteuse fixe les substances d’une manière sélective, ressemblant à un complexe substrat-enzyme. Des molécules similaires (y compris des toxiques) peuvent entrer en compétition vis-à-vis de la molécule porteuse spécifique jusqu’à ce que le point de saturation soit atteint. Des toxiques peuvent entrer en compétition vis-à-vis de la molécule porteuse; une fois liés à celle-ci de façon irréversible, le transport est bloqué. Chaque type de molécule porteuse présente un taux de transport caractéristique. S’il est réalisé dans les deux directions, le transport est appelé diffusion d’échange.
Le transport actif
Dans le cas de certaines substances vitales pour la cellule, un type spécial de transporteur existe, qui permet le transport contre le gradient de concentration ou le potentiel électrique («en amont»). La molécule porteuse présente une grande stéréospécificité et elle est saturable.
Ce type de transport nécessite de l’énergie, qui lui est fournie par le clivage catalytique de molécules d’ATP en molécules d’ADP par l’enzyme adénosine triphosphatase (ATP-ase).
Des toxiques peuvent interférer avec ce type de transport par inhibition compétitive ou non compétitive des molécules porteuses ou par inhibition de l’activité ATP-asique.
L’endocytose
L’endocytose est un mécanisme de transport au cours duquel la membrane cellulaire enveloppe le matériau pour former une vésicule pénétrant dans la cellule. Lorsque le matériau concerné est liquide, le processus est appelé pinocytose. Dans certains cas, ce matériau est lié à un récepteur et le complexe ainsi formé est transporté par une vésicule membranaire. C’est ce type de transport qu’utilisent notamment les cellules épithéliales du tractus gastro-intestinal et les cellules hépatiques et rénales.
L’absorption des toxiques
L’organisme est exposé à de nombreux toxiques présents dans l’environnement général ou professionnel. Ces toxiques peuvent pénétrer dans l’organisme par trois portes d’entrée principales:
• l’appareil respiratoire, par inhalation de l’air pollué; • l’appareil gastro-intestinal, par ingestion de nourriture, d’eau ou de boissons contaminées; • la peau, par pénétration cutanée au niveau du derme.
Dans l’industrie, l’inhalation représente la principale porte d’entrée des toxiques, suivie de la pénétration cutanée. Dans l’agriculture, l’absorption en cas d’exposition à certains pesticides se fait autant par la peau que par inhalation. Quant à la population dans son ensemble, elle est exposée par voie gastro-intestinale essentiellement (ingestion de nourriture, d’eau et de boissons contaminées), mais aussi par voie inhalatoire et, plus rarement, par pénétration cutanée.
L’absorption par la voie respiratoire
L’absorption pulmonaire représente la principale voie de captation de nombreux toxiques présents dans l’air (gaz, vapeurs, fumées, brouillards, poussières, aérosols, etc.).
L’appareil respiratoire constitue un système idéal pour les échanges gazeux. Il présente en effet une surface membranaire totale allant de 30 m2 (à l’expiration) à 100 m2 (lors d’une inspiration profonde), faisant face à un réseau capillaire d’environ 2 000 km. Le système, développé au cours de l’évolution, est localisé dans un espace relativement petit (cavité thoracique) protégé par les côtes.
Anatomiquement et physiologiquement, l’appareil respiratoire peut être divisé en trois compartiments:
• la partie supérieure ou nasopharyngienne, s’étendant du nez au pharynx et au larynx, fait fonction de système de climatisation; • l’arbre trachéo-bronchique, composé de nombreux tubes de tailles diverses acheminant l’air aux poumons; • le compartiment pulmonaire, consistant en des millions d’alvéoles (sacs alvéolaires) disposées à la façon de grappes de raisins (disposition racémeuse).
Les toxiques hydrophiles sont facilement absorbés par l’épithélium de la région nasopharyngienne, l’épithélium des régions nasopharyngienne et trachéo-bronchique étant recouvert en totalité d’un film aqueux. Les toxiques lipophiles sont un peu absorbés dans ces deux régions, mais ils le sont principalement au niveau des alvéoles par diffusion à travers les membranes alvéolo-capillaires. Le taux d’absorption dépend de la ventilation pulmonaire, du débit cardiaque (qui conditionne le flux sanguin au niveau pulmonaire), de la solubilité du toxique dans le sang et de son métabolisme.
C’est au niveau alvéolaire que s’effectuent les échanges gazeux. La paroi alvéolaire est constituée d’un épithélium, d’une membrane basale interstitielle, de tissu conjonctif et d’un endothélium capillaire. A travers ces couches dont l’épaisseur est de 0,8 µm environ, la diffusion des toxiques est très rapide. Dans les alvéoles, le toxique est échangé entre la phase aérienne et la phase liquide (sang). Le taux d’absorption d’un toxique (distribution de l’air vers le sang) dépend de sa concentration dans l’air alvéolaire et du coefficient de partage de Nernst pour le sang (coefficient de solubilité).
Dans le sang, le toxique est dissous dans la phase liquide par simple processus physique ou par suite de sa liaison aux cellules sanguines ou aux constituants plasmatiques selon l’affinité chimique ou par adsorption. Le sang contenant 75% d’eau, les gaz et les vapeurs hydrophiles présentent donc une grande solubilité dans le plasma (par exemple, les alcools). Les toxiques lipophiles (comme le benzène) sont généralement liés aux cellules ou aux macromolécules telles que l’albumine.
Dès le début d’une exposition par voie pulmonaire, deux processus opposés surviennent: l’absorption et la désorption. L’équilibre entre ces processus dépend de la concentration du toxique dans l’air alvéolaire et le sang. En début d’exposition, la concentration sanguine en toxiques est nulle et la rétention dans ce milieu est pratiquement totale. Avec la poursuite de l’exposition, un équilibre s’établit entre l’absorption et la désorption. Les toxiques hydrophiles atteignent rapidement l’équilibre et le taux d’absorption dépend de la ventilation pulmonaire plutôt que du flux sanguin. Les toxiques lipophiles ont besoin d’un temps plus long pour atteindre l’équilibre et, dans ce cas, le flux de sang insaturé commande le taux d’absorption.
Le dépôt des particules et des aérosols dans le tractus respiratoire dépend de facteurs physiques et physiologiques et de la taille des particules. Plus la particule est petite, plus elle pénètre profondément dans le tractus respiratoire.
La rétention relativement faible des particules de poussière observée de façon constante dans les poumons de personnes fortement exposées (les mineurs, par exemple) donne à penser qu’il existe un système très efficace de clairance des particules. Dans la partie supérieure du tractus respiratoire (zone trachéo-bronchique), cette fonction est assurée par une couche mucociliaire. Dans la partie pulmonaire, trois mécanismes ou niveaux interviennent: 1) la couche mucociliaire; 2) la phagocytose; 3) la pénétration directe des particules à travers la paroi alvéolaire.
Les 17 premières des 23 arborescences de l’arbre trachéo-bronchique possèdent des cellules épithéliales ciliées. Par leurs mouvements, ces cils poussent continuellement une couche de mucus vers la bouche. Les particules déposées sur cette couche mucociliaire sont avalées au niveau buccal (ingestion). Une couche de mucus couvre également la surface de l’épithélium alvéolaire, se déplaçant en direction de la couche mucociliaire. De plus, des cellules spécialisées pouvant se déplacer — les phagocytes — absorbent les particules et les micro-organismes présents dans les alvéoles et migrent dans deux directions possibles:
• vers la couche mucociliaire, qui les achemine ensuite vers la bouche; • à travers les espaces intercellulaires de la paroi alvéolaire vers le système lymphatique pulmonaire; les particules peuvent aussi pénétrer directement par cette voie.
L’absorption au niveau de l’appareil gastro-intestinal
Les toxiques peuvent être ingérés à la suite d’une ingestion accidentelle, de l’absorption de nourriture ou de boissons contaminées, ou par ingestion de particules éliminées par le tractus respiratoire.
Le tractus digestif dans son intégralité, depuis l’œsophage jusqu’à l’anus, présente la même structure de base. Une couche muqueuse (épithélium) est sous-tendue de tissu conjonctif et, au-delà, par un réseau de capillaires et de muscle lisse. La surface de l’épithélium stomacal est très plissée ce qui accroît la surface d’absorption et de sécrétion. La surface intestinale contient de nombreux replis (villosités), capables d’absorber le matériel par «pompage». La surface active pour l’absorption dans les intestins est d’environ 100 m2.
Au niveau du tractus gastro-intestinal, tous les processus d’absorption sont très actifs:
• transport transcellulaire par diffusion à travers la couche lipidique ou les pores des membranes cellulaires, ou encore par filtration au niveau des pores; • diffusion paracellulaire à travers les jonctions intercellulaires; • diffusion facilitée et transport actif; • endocytose et mécanisme de pompage au niveau des villosités.
Certains ions de métaux toxiques utilisent les systèmes de transport spécialisés des éléments essentiels: le thallium, le cobalt et le manganèse font appel au système de transport du fer, le plomb employant celui du calcium.
De nombreux facteurs ont une influence sur le taux d’absorption des toxiques dans les diverses parties du tractus gastro-intestinal:
• les propriétés physico-chimiques des toxiques, particulièrement le coefficient de partage de Nernst et la constante de dissociation; dans le cas des particules, leur granulométrie revêt une importance particulière: en effet, plus elles sont petites, plus elles sont solubles; • la quantité de nourriture présente dans le tractus gastro-intestinal (effet de dilution); • le temps de rétention dans chaque partie du tractus gastro-intestinal (de quelques minutes au niveau buccal à une heure dans l’estomac et plusieurs heures au niveau intestinal); • la surface d’absorption et la capacité d’absorption de l’épithélium; • le pH local, qui régit l’absorption des toxiques ionisés; dans le pH acide de l’estomac, les composés acides non ionisés seront plus facilement absorbés;
• le péristaltisme (mouvement musculaire au niveau des intestins) et le flux sanguin local; • les sécrétions gastriques et intestinales transforment les toxiques en produits plus ou moins solubles; la bile est un agent émulsif produisant des complexes plus solubles (hydrotrophie); • l’exposition combinée à d’autres toxiques, produisant des effets synergiques ou antagonistes lors des processus d’absorption; • la présence d’agents complexants ou chélateurs; • l’action de la microflore du tractus gastro-intestinal (environ 1,5 kg), quelque 60 espèces de bactéries différentes pouvant intervenir dans la biotransformation des toxiques.
Il faut également mentionner la circulation entéro-hépatique. Les toxiques ou leurs métabolites polaires (glucuronides et autres conjugués) sont excrétés avec la bile dans le duodénum. A ce niveau, les enzymes de la microflore réalisent une hydrolyse et les produits libérés peuvent être réabsorbés et transportés par la veine porte vers le foie. Ce mécanisme est très dangereux dans le cas de substances hépatotoxiques, car il permet leur accumulation temporaire dans le foie.
S’agissant des toxiques biotransformés dans le foie en métabolites moins toxiques ou non toxiques, l’ingestion peut représenter une voie d’entrée moins dangereuse. Après absorption dans le tractus gastro-intestinal, ces toxiques sont transportés par la veine porte au foie où ils peuvent être partiellement détoxifiés par biotransformation.
L’absorption à travers la peau (dermique, percutanée)
La peau (1,8 m2 de surface chez l’adulte) et les muqueuses des orifices recouvrent la surface corporelle. La peau agit comme un rempart vis-à-vis des agents physiques, chimiques et biologiques et, entre autres tâches physiologiques, elle maintient l’intégrité du corps et l’homéostasie.
La peau est constituée de trois couches: l’épiderme, la vraie peau (le derme) et les tissus sous-cutanés (hypoderme). Du point de vue toxicologique, l’épiderme est du plus grand intérêt. Il est constitué de nombreuses couches cellulaires. Une surface calleuse de cellules mortes aplaties (stratum corneum, couche cornée) constitue la couche supérieure, sous laquelle se trouvent une couche continue de cellules vivantes (stratum corneum compactum, couche cornée compacte), une membrane lipidique typique, puis le stratum lucidum, le stratum granulosum et le stratum mucosum. La membrane lipidique représente une barrière protectrice que traversent les follicules des poils et les canaux des glandes sudoripares dans les parties velues de la peau. L’absorption dermique peut donc se faire selon les mécanismes suivants:
• absorption transépidermale par diffusion à travers la membrane lipidique (barrière), principalement pour les substances lipophiles (solvants organiques, pesticides, etc.) et, dans une moindre mesure, par certaines substances hydrophiles à travers les pores; • absorption transfolliculaire autour de la tige des follicules pileux, évitant ainsi la barrière membranaire; cette absorption a lieu au niveau des surfaces cutanées pileuses; • absorption au niveau des canaux sudoripares, dont la section transversale correspond à environ 0,1 à 1% de la superficie totale de la peau (l’absorption relative suit cette proportion); • absorption à travers la peau quand celle-ci est lésée pour des raisons mécaniques, thermiques, chimiques ou par suite d’affections cutanées; les couches cutanées, y compris la barrière lipidique, sont alors rompues et la voie est libre pour la pénétration des toxiques et des agents dangereux.
Le taux d’absorption à travers la peau dépend de nombreux facteurs:
• la concentration du toxique, le type de véhicule (milieu), la présence d’autres substances; • le degré d’hydratation cutanée, le pH, la température, le flux sanguin local, la transpiration, la surface de peau contaminée, l’épaisseur de la peau; • les caractéristiques anatomiques et physiologiques de la peau en fonction du sexe, de l’âge, des variations individuelles, des différences de nature ethnique ou raciale, etc.
Le transport des toxiques par voie sanguine et lymphatique
Quelle que soit la voie d’absorption, les toxiques atteignent le sang, la lymphe ou les autres fluides corporels. Le sang représente le véhicule principal assurant le transport des toxiques et de leurs métabolites.
Le sang, tissu liquide fluide circulant, transporte l’oxygène et les nutriments nécessaires aux cellules et élimine les produits de déchet du métabolisme. Il contient également des composants cellulaires, des hormones et d’autres molécules participant à de nombreuses fonctions physiologiques. Le sang circule à l’intérieur d’un réseau de vaisseaux sanguins, relativement bien fermé et sous pression élevée en raison de l’activité cardiaque. Cette pression élevée entraîne une fuite liquidienne et le système lymphatique fait office de système de drainage grâce à un fin réseau de petits capillaires lymphatiques à paroi mince ayant des ramifications dans les tissus mous et les organes.
Le sang est le mélange d’une phase liquide (plasma, 55%) et d’une phase solide constitué de cellules sanguines (45%). Le plasma contient des protéines (albumines, globulines, fibrinogène), des acides organiques (lactique, glutamique, citrique) et de nombreuses autres substances (lipides, lipoprotéines, glycoprotéines, enzymes, sels, xénobiotiques, etc.). Les cellules sanguines comprennent les érythrocytes, les leucocytes, les réticulocytes, les monocytes et les plaquettes.
Les toxiques sont absorbés sous forme moléculaire ou ionique. Certains d’entre eux forment, au pH du sang, des particules colloïdales constituant la troisième forme de transport dans ce liquide. Les molécules, les ions et les colloïdes toxiques sont transportés dans le sang de diverses manières:
• par liaison physique ou chimique aux éléments du sang, surtout aux érythrocytes; • par dissolution physique dans le plasma à l’état libre; • par liaison à un ou plusieurs types de protéines plasmatiques, complexés avec des acides organiques ou avec d’autres fractions du plasma.
La plupart des toxiques sanguins se trouvent soit à l’état libre dans le plasma, soit liés aux érythrocytes et aux constituants plasmatiques. Leur distribution dépend de leur affinité envers ces constituants. Toutes les fractions sont en équilibre dynamique.
Certains toxiques sont transportés par les éléments du sang — la plupart par les érythrocytes — très rarement par les leucocytes. Les toxiques peuvent être adsorbés à la surface des érythrocytes ou se lier aux ligands du stroma. S’ils pénètrent dans les érythrocytes, ils peuvent se lier à l’hème (le monoxyde de carbone et le sélénium, par exemple) ou à la globine (Sb111, Po210). Parmi les toxiques transportés par les érythrocytes, on trouve l’arsenic, le césium, le plomb, le radium, le sodium et le thorium. Le chrome hexavalent est exclusivement lié aux érythrocytes et le chrome trivalent aux protéines plasmatiques. Dans le cas du zinc, on assiste à une concurrence entre les érythrocytes et le plasma. Le plomb est transporté à 96% environ par les érythrocytes. Le mercure organique est principalement lié aux érythrocytes, le mercure inorganique étant en majeure partie acheminé par l’albumine plasmatique. De petites fractions de béryllium, de cuivre, de tellure et d’uranium sont prises en charge par les érythrocytes.
La majorité des toxiques sont transportés par le plasma ou les protéines plasmatiques. De nombreux électrolytes sont présents sous forme ionique en équilibre avec les molécules non ionisées libres ou associées aux fractions plasmatiques. La fraction ionique des toxiques est très diffusible et pénètre à travers les parois des capillaires dans les tissus et organes. Les gaz et vapeurs peuvent être dissous dans le plasma.
Les protéines plasmatiques possèdent une surface totale d’environ 600 à 800 km2 pouvant assurer l’absorption des toxiques. Les molécules d’albumine possèdent environ 109 ligands cationiques et 120 ligands anioniques à la disposition des ions. De nombreux ions sont partiellement transportés par l’albumine (cadmium, cuivre et zinc, par exemple). Il en va de même pour les composés tels que les dinitro- et ortho-crésols, les dérivés nitrés et halogénés des hydrocarbures aromatiques et les phénols.
Les molécules de globuline (alpha et bêta) transportent des toxiques de faible poids moléculaire, des ions métalliques (cuivre, fer et zinc) et des particules colloïdales. Le fibrinogène a une affinité pour les molécules de faible poids moléculaire. Divers types de liaisons peuvent se former entre les toxiques et les protéines plasmatiques: forces de van der Waals, attraction de charges, association entre groupes polaires et apolaires, ponts hydrogène, liaisons covalentes.
Les lipoprotéines plasmatiques transportent des toxiques lipophiles comme les PCB. Les autres fractions plasmatiques interviennent aussi dans ce transport. L’affinité des toxiques pour les protéines plasmatiques témoigne de leur affinité protéique dans les tissus et les organes lors de la distribution.
Les acides organiques (lactique, glutamique, citrique) forment des complexes avec certains toxiques. Les éléments alcalins et les terres rares, de même que certains éléments lourds sous forme cationique, sont également complexés avec des oxyacides organiques et des acides aminés. Tous ces complexes sont généralement diffusibles et facilement distribués dans les tissus et les organes.
Physiologiquement, les agents chélateurs plasmatiques tels que la transferrine et la métallothionéine rivalisent avec les acides organiques et les acides aminés vis-à-vis des cations pour former des chélates stables.
Les ions libres diffusibles et certains complexes et molécules libres passent facilement du sang aux tissus et aux organes. La fraction libre des ions et des molécules est en équilibre dynamique avec la fraction liée. La distribution d’un toxique du sang vers les tissus et les organes ou, inversement, sa mobilisation depuis les tissus et les organes vers le sang, dépendent de sa concentration sanguine.
La distribution des toxiques dans l’organisme
L’organisme humain peut être divisé en plusieurs compartiments: 1) les organes internes; 2) la peau et les muscles; 3) le tissu adipeux; 4) le tissu conjonctif et le tissu osseux. Cette classification est principalement basée sur le degré, en l’occurrence décroissant, d’irrigation vasculaire (sanguine). Ainsi, les organes internes (dont le cerveau), représentant 12% du poids corporel total, reçoivent environ 75% du volume sanguin total. A l’opposé, les tissus conjonctif et osseux (15% du poids total du corps) ne reçoivent que 1% du volume sanguin total.
Les organes internes fortement irrigués atteignent généralement la plus forte concentration toxique dans le temps le plus court; de même, l’état d’équilibre entre ces organes et le sang est atteint plus rapidement. La captation des toxiques par les tissus moins perfusés est plus lente, mais la rétention y est plus forte et la durée de séjour plus longue (accumulation) en raison de la faible perfusion.
Trois éléments revêtent une importance capitale dans la distribution intracellulaire des toxiques: l’eau, les lipides et les protéines, et en particulier leur teneur dans les cellules des divers tissus et organes. Les compartiments susmentionnés se caractérisent par une teneur en eau cellulaire décroissante. Les toxiques hydrophiles sont distribués plus rapidement dans les fluides et les cellules riches en eau, alors que la distribution des toxiques lipophiles est plus rapide vers les cellules à contenu lipidique élevé (tissus gras).
L’organisme possède des barrières empêchant la pénétration de certains groupes de toxiques, surtout hydrophiles, dans des organes et des tissus:
• la barrière hémato-encéphalique (barrière cérébro-spinale), qui restreint la pénétration de molécules de poids moléculaire élevé et celle de toxiques hydrophiles dans le cerveau et le SNC; cette barrière est constituée d’une couche de cellules endothéliales étroitement soudées que les toxiques lipophiles sont les seuls à pouvoir traverser; • la barrière placentaire, qui a un effet comparable sur la pénétration des toxiques du sang maternel vers le fœtus; • la barrière histo-hématologique dans les parois des capillaires, perméable aux molécules de petite taille et de taille intermédiaire ainsi qu’à certaines grosses molécules et aux ions.
Comme nous l’avons déjà mentionné, seules les formes libres des toxiques dans le plasma (molécules, ions, colloïdes) peuvent pénétrer à travers les parois capillaires. Cette fraction libre est en équilibre dynamique avec la fraction liée. La concentration des toxiques dans le sang, qui est elle aussi en équilibre dynamique avec leur concentration dans les organes et les tissus, commande leur rétention (accumulation) ou leur mobilisation dans ces milieux.
L’état général de l’organisme, l’état fonctionnel des organes (en particulier la régulation neuro-humorale), l’équilibre hormonal et d’autres facteurs jouent un rôle dans la distribution.
La rétention d’un toxique dans un compartiment donné est généralement temporaire et se termine par une redistribution vers d’autres tissus. La rétention et l’accumulation sont basées sur les différences entre vitesse d’absorption et vitesse d’élimination. La durée de rétention dans un compartiment est exprimée par la demi-vie biologique, intervalle de temps durant lequel 50% du toxique sont éliminés du tissu ou de l’organe pour être redistribués dans l’organisme ou en être éliminés.
Lors de la distribution et de la rétention dans les organes et tissus, on asssiste à divers processus de biotransformation. Cette biotransformation produit des métabolites plus polaires et plus hydrophiles, qui sont plus faciles à éliminer. Un taux faible de biotransformation d’un toxique lipophile provoque généralement son accumulation dans un compartiment.
Les toxiques peuvent être divisés en quatre groupes principaux selon leur affinité et leur mode prédominant de rétention et d’accumulation dans un compartiment particulier:
• Les toxiques solubles dans les fluides corporels sont distribués uniformément selon la teneur en eau des compartiments. De nombreux cations monovalents (lithium, potassium, rubidium, sodium, par exemple) et certains anions (chlore, brome, etc.) sont distribués selon ce modèle. • Les toxiques lipophiles montrent une forte affinité pour les organes (SNC) et tissus (gras, adipeux) riches en lipides. • Les toxiques formant des particules colloïdes sont captés par les cellules spécialisées du système réticulo-endothélial des tissus et organes. Les cations tri- et quadrivalents (lanthane, césium, hafnium) sont distribués dans ce système des tissus et des organes. • Certains toxiques ont une forte affinité pour les tissus osseux et conjonctifs (éléments ostéotrophiques, «chercheurs d’os»), y compris les toxiques cationiques divalents (aluminium, baryum, béryllium, cadmium, calcium, plomb, radium, strontium, par exemple).
L’accumulation dans les tissus riches en lipides
Un homme «normal» de 70 kg de poids corporel est constitué de 15% environ de tissu adipeux (jusqu’à 50% chez l’obèse), mais cette fraction lipidique n’est pas répartie uniformément. Le cerveau (SNC) est un organe riche en lipides et les nerfs périphériques sont entourés d’une gaine de myéline riche en lipides et en cellules de Schwann, tissus qui tous permettent l’accumulation de toxiques lipophiles.
De nombreux toxiques non ionisés et apolaires ayant un coefficient de partage de Nernst favorable seront distribués dans ce compartiment, de même que de nombreux solvants organiques (alcools, aldéhydes, cétones, etc.), des hydrocarbures chlorés (dont les insecticides organochlorés comme le DDT), certains gaz inertes (radon), etc.
Le tissu adipeux accumule les toxiques en raison de sa vascularisation et de son taux de biotransformation faibles. L’accumulation des toxiques peut y représenter une sorte de «neutralisation» temporaire du fait de l’absence de cibles pour l’effet toxique dans ce milieu. Cependant, le danger potentiel pour l’organisme est toujours présent en raison de la possibilité d’une mobilisation des toxiques depuis ce compartiment vers la circulation.
Le dépôt de toxiques au niveau cérébral (SNC) ou dans le tissu riche en lipides de la gaine de myéline du système nerveux périphérique s’avère très nocif. En effet, les neurotoxiques sont déposés directement à proximité de leur cible. Les toxiques retenus dans les tissus riches en lipides des glandes endocrines peuvent entraîner des troubles hormonaux. Malgré la barrière hémato-encéphalique, de nombreux neurotoxiques lipophiles atteignent le cerveau (SNC): anesthésiques, organomercuriels, pesticides, plomb tétraéthyle, solvants organiques, etc.
La rétention dans le système réticulo-endothélial
Dans tous les tissus et organes, des cellules spéciales possèdent une activité phagocytaire leur permettant de piéger les micro-organismes, les particules, les particules colloïdales, etc. Ce système, appelé système réticulo-endothélial, comporte à la fois des cellules fixes et des cellules mobiles (phagocytes) présentes sous forme inactive. Lorsqu’elles se trouvent exposées à un nombre élevé de microbes ou de particules, ces cellules sont activées jusqu’à un point de saturation.
Les toxiques colloïdaux sont captés par le système réticulo-endothélial des organes et des tissus. La distribution dépend de la taille des particules colloïdales, la rétention des plus grosses particules ayant lieu préférentiellement dans le foie. Pour les particules colloïdales plus petites, une distribution plus ou moins uniforme se fait entre la rate, la moelle osseuse et le foie. Au niveau du SNC, la clairance des colloïdes est très lente, alors que les petites particules sont éliminées de façon relativement plus rapide.
L’accumulation osseuse
Environ 60 éléments sont identifiés comme éléments ostéotrophiques, ou «chercheurs d’os».
Les éléments ostéotrophiques peuvent être divisés en trois groupes:
1. Les éléments formant ou remplaçant des constituants physiologiques de l’os. Vingt éléments de ce type sont présents en plus forte quantité, les autres ne se retrouvant qu’à l’état de traces. Lors d’une exposition chronique, des métaux toxiques tels que le plomb, l’aluminium et le mercure peuvent également pénétrer dans la matrice minérale osseuse. 2. Les éléments alcalins et d’autres éléments formant des cations dont le diamètre ionique est identique à celui du calcium sont échangeables avec lui dans la partie minérale de la substance osseuse. De même, certains anions sont échangeables avec les anions (phosphate, hydroxyle) de cette même substance osseuse. 3. Les éléments formant des microcolloïdes (terres rares) peuvent être adsorbés à la surface du minéral osseux.
Le squelette d’un homme normal représente 10 à 15% du poids corporel total et constitue un potentiel de stockage important pour les toxiques ostéotrophiques. L’os est un tissu hautement spécialisé formé, en volume, de 54% de minéraux et de 38% de matrice organique. La matrice minérale osseuse est constituée d’hydroxyapatite, Ca10(PO4)6(OH)2, dans laquelle le rapport Ca/P est d’environ 1,5 à 1. La surface de minéral disponible pour l’adsorption est d’environ 100 m2 par gramme de tissu osseux.
Les os du squelette peuvent être divisés en deux catégories en fonction de leur activité métabolique:
• l’os actif, au point de vue métabolique, dans lequel les processus de résorption et de formation de nouveau tissu osseux, ou de remodelage de tissu osseux existant, sont très importants; • l’os stable à faible taux de remodelage ou de croissance.
Chez le fœtus, le nouveau-né et le jeune enfant, l’os métabolique («squelette disponible») représente près de 100% du squelette. Ce pourcentage d’os métabolique décroît avec l’âge. L’incorporation des toxiques lors d’une exposition se fait dans l’os métabolique et dans les compartiments se renouvelant plus lentement.
Cette incorporation se produit de deux manières:
1. Dans le cas des ions, un échange a lieu avec les ions calcium présents, ou les anions (phosphate, hydroxyle). 2. Pour les toxiques formant des particules colloïdes, l’adsorption se fait à la surface du minéral.
Les réactions d’échange ionique
L’os minéral, hydroxyapatite, représente un système complexe d’échange ionique. Les ions calcium peuvent être échangés avec divers cations. Les anions présents dans l’os peuvent également être échangés par des anions: le phosphate par des citrates et des carbonates, l’hydroxyle par des fluorures. Les ions non échangeables peuvent être adsorbés à la surface minérale. Lorsque des ions toxiques sont incorporés dans le minéral, une nouvelle couche de minéral peut recouvrir la précédente, emprisonnant le toxique dans la structure osseuse. L’échange ionique est un processus réversible, dépendant de la concentration en ions, du pH et du volume de fluide. Ainsi, une augmentation en calcium alimentaire peut faire diminuer le dépôt d’ions toxiques dans le réseau minéral. Avec l’âge, le pourcentage d’os métabolique baisse, alors que l’échange ionique se poursuit; on assiste alors à une résorption osseuse, au cours de laquelle la densité osseuse décroît. Les toxiques présents dans l’os peuvent alors être relargués (plomb, par exemple).
Environ 30% des ions incorporés dans les os sont faiblement fixés et peuvent être échangés, capturés par des agents chélateurs naturels, puis excrétés, avec une demi-vie biologique de 15 jours. Les 70% restants sont fixés plus solidement, leur mobilisation et leur excrétion ayant une demi-vie biologique de 2,5 années ou plus selon le type d’os (processus de remodelage).
Les agents chélateurs (Ca-EDTA, pénicillamine, BAL, etc.) peuvent mobiliser des quantités très importantes de métaux lourds et entraîner une forte augmentation de leur excrétion urinaire.
L’adsorption des colloïdes
Les particules colloïdales sont adsorbées à la manière d’un film sur la surface minérale (100 m2 par g) par des forces de van der Waals ou par adsorption chimique. Cette couche colloïdale est ensuite recouverte par la couche suivante de minéral et les toxiques sont alors intériorisés dans la structure osseuse. Le taux de mobilisation et d’élimination dépend des processus de remodelage.
L’accumulation dans les cheveux et les ongles
Les cheveux et les ongles, riches en groupes thiols, contiennent de la kératine, capables de chélater les cations métalliques comme le mercure et le plomb.
La distribution du toxique dans la cellule
La distribution de certains toxiques, en particulier les métaux lourds, à l’intérieur des cellules dans les tissus et les organes a fait l’objet d’études récentes. Grâce aux techniques d’ultracentrifugation, il est possible de séparer les diverses fractions cellulaires pour étudier leur teneur en ions métalliques et autres toxiques.
Les études chez l’animal ont montré qu’après pénétration dans la cellule, certains ions métalliques sont liés à une molécule spécifique, la métallothionéine. Cette protéine de faible poids moléculaire est présente dans les cellules hépatiques, rénales, et dans d’autres organes et tissus. Les groupes thiols de cette molécule peuvent fixer six ions par molécule. La biosynthèse de cette protéine résulte de la présence accrue d’ions métalliques. Les ions cadmium sont les plus puissants inducteurs. La métallothionéine a également pour fonction de maintenir l’homéostasie des ions vitaux comme le cuivre et le zinc. Elle peut fixer le bismuth, le cadmium, le cobalt, le cuivre, le mercure, l’or, le zinc et d’autres cations.
La biotransformation et l’élimination des toxiques
Durant leur rétention dans les cellules des divers tissus et organes, les toxiques sont exposés à des enzymes qui peuvent les biotransformer (métaboliser) et les transformer en métabolites. L’élimination des toxiques ou de leurs métabolites peut se faire de multiples façons: par l’air exhalé, l’urine, la bile, la sueur, la salive, le lait, les cheveux et les ongles.
Elle dépend de la voie d’entrée. Au niveau pulmonaire, le processus d’absorption/désorption débute immédiatement, les toxiques étant partiellement éliminés par l’air exhalé. Plus longue, l’élimination des toxiques absorbés par les autres voies commence après le transport sanguin et n’est complète qu’après distribution et biotransformation. Pendant l’absorption, on assiste à un équilibre entre les concentrations du toxique dans le sang et dans les tissus et organes. L’excrétion fait diminuer la concentration sanguine du toxique et peut induire sa mobilisation depuis les tissus vers le sang.
De nombreux facteurs exercent une influence sur le taux d’élimination des toxiques et de leurs métabolites:
• les propriétés physico-chimiques, en particulier le coefficient de partage de Nernst (P), la constante de dissociation (pKa), la polarité, la structure moléculaire, la forme et le poids moléculaire; • le niveau d’exposition, le temps d’élimination après exposition; • la voie d’entrée; • la distribution dans les compartiments corporels, qui diffèrent par leur taux d’échange avec le sang et leur circulation sanguine; • le taux de biotransformation des toxiques lipophiles en métabolites plus hydrophiles; • l’état de santé général de l’organisme et, spécialement, des organes excréteurs (poumons, reins, tractus gastro-intestinal, peau, etc.); • la présence d’autres toxiques pouvant perturber l’élimination.
Il est possible de distinguer deux groupes de compartiments: 1) le système d’échange rapide dans lequel la concentration tissulaire du toxique est semblable à celle du sang; 2) le système d’échange lent, où cette concentration est plus élevée que dans le sang en raison d’une liaison et d’une accumulation, au niveau du tissu adipeux, du squelette et des reins, ce qui se traduit par une rétention temporaire de certains toxiques, l’arsenic et le zinc, par exemple.
Un toxique peut être éliminé simultanément par deux ou plusieurs voies d’excrétion. Cependant, une voie est généralement prédominante.
Les scientifiques ont mis au point des modèles mathématiques décrivant l’excrétion d’un toxique donné. Ces modèles sont basés sur la mobilisation à partir d’un ou de deux compartiments (systèmes d’échange), sur la biotransformation, etc.
L’élimination par l’air exhalé
L’élimination par les poumons (désorption) est caractéristique des toxiques ayant une forte volatilité (solvants organiques, par exemple). Les gaz et les vapeurs de faible solubilité dans le sang seront facilement éliminés par cette voie, les toxiques de forte solubilité dans le sang l’étant par d’autres voies.
Les solvants organiques absorbés par le tractus gastro-intestinal ou la peau sont partiellement éliminés par l’air inhalé à chaque passage du sang à travers les poumons, s’ils ont une pression de vapeur suffisante. L’Alcootest utilisé pour déceler et évaluer l’alcoolémie des conducteurs fait appel à cette propriété. La concentration en oxyde de carbone dans l’air exhalé est en équilibre avec la teneur du sang en carboxyhémoglobine. Le radon, gaz radioactif, apparaît dans l’air exhalé à la suite de la baisse du radium accumulé dans le squelette.
L’élimination d’un toxique par l’air exhalé en fonction de la période postérieure à l’exposition est généralement exprimée par une courbe triphasique. La première phase correspond à l’élimination du toxique du sang, à demi-vie courte. La seconde phase, plus lente, représente l’élimination par échange sanguin avec les tissus et les organes (système d’échange rapide). La troisième phase, très lente, est due à l’échange du sang avec les tissus adipeux et le squelette. Si le toxique n’est pas accumulé dans ces derniers compartiments, la courbe sera biphasique. Dans certains cas, on peut aussi obtenir une courbe à quatre phases.
Pour établir l’exposition des travailleurs, on procède parfois au dosage des gaz et des vapeurs dans l’air exhalé au cours de la période suivant l’exposition.
L’excrétion rénale
Le rein est un organe spécialisé dans l’excrétion de nombreux toxiques et métabolites hydrosolubles, permettant de maintenir l’homéostasie de l’organisme. Chaque rein possède environ un million de néphrons capables d’assurer cette excrétion. L’excrétion rénale est un mécanisme très complexe comprenant trois processus:
• la filtration glomérulaire au niveau de la capsule de Bowman; • le transport actif au niveau du tube proximal; • le transport passif au niveau du tube distal.
L’excrétion d’un toxique par la voie urinaire dépend du coefficient de partage de Nernst, de la constante de dissociation et du pH urinaire, de la taille et de la forme de la molécule, de sa transformation en métabolites plus hydrophiles et de l’état de la fonction rénale.
La cinétique de l’excrétion rénale d’un toxique et de ses métabolites peut être schématisée par une courbe à deux, trois ou quatre phases, selon la distribution du toxique dans les divers compartiments corporels en fonction de la vitesse d’échange avec le sang.
La salive
Certains médicaments et ions métalliques peuvent être excrétés par la salive, par exemple, le plomb («liséré de Burton»), le mercure, l’arsenic, le cuivre, de même que les bromures et les iodures, l’alcool éthylique, les alcaloïdes, etc. Les toxiques sont ensuite ingérés pour atteindre le tractus gastro-intestinal, où ils peuvent être réabsorbés ou éliminés par les fèces.
La sueur
De nombreux produits non ionisés peuvent être partiellement éliminés par la sueur: alcool éthylique, acétone, phénols, sulfure de carbone et hydrocarbures chlorés.
De nombreux métaux, solvants organiques et certains pesticides organochlorés (DDT) sont excrétés dans le lait maternel. Cette excrétion lactée peut représenter un danger pour les enfants lors de l’allaitement.
Les cheveux
L’analyse des cheveux peut être utilisée comme indicateur de l’homéostasie pour diverses substances physiologiques. On peut évaluer par ce moyen l’exposition à certains toxiques, les métaux lourds en particulier.
L’élimination des toxiques peut être accélérée par:
• la translocation mécanique par lavage gastrique, transfusion sanguine ou dialyse; • la création de conditions physiologiques mobilisant les toxiques par un régime, un changement dans l’équilibre hormonal ou l’amélioration de la fonction rénale par administration de diurétiques; • l’administration d’agents complexants (citrates, oxalates, salicylates, phosphates) ou d’agents chélateurs (Ca-EDTA, BAL, ATA, DMSA, pénicillamine); cette méthode est uniquement indiquée dans le cas des personnes soumises à un contrôle médical strict. Les agents chélateurs sont souvent administrés aux travailleurs exposés à des métaux lourds pour leur permettre de les éliminer de leur organisme. On les emploie aussi pour évaluer la charge corporelle totale et les expositions antérieures.
L’évaluation de l’exposition
Le dosage des toxiques et des métabolites dans le sang, l’air exhalé, l’urine, la sueur, les fèces et les cheveux est de plus en plus utilisé pour évaluer l’exposition humaine (tests d’exposition) ou le degré d’intoxication. C’est ainsi que des limites biologiques d’exposition (concentrations maximales admissibles (MAC)) et des indices biologiques d’exposition (Biological Exposure Indices (BEI)) ont été établis récemment. Ces dosages biologiques permettent d’évaluer l’«exposition interne» de l’organisme, c’est-à-dire l’exposition totale du corps à la fois dans l’environnement général et dans le milieu de travail, quelles que soient les voies de pénétration (voir l’article «Les indicateurs biologiques»).
Les effets combinés en cas d’expositions multiples
Les individus sont exposés d’ordinaire, sur leur lieu de travail comme dans l’environnement général, à plusieurs agents physiques et chimiques de façon simultanée ou consécutive. En outre, certaines personnes prennent des médicaments, fument, consomment de l’alcool et de la nourriture contenant des additifs, etc., autant de facteurs à l’origine eux aussi d’expositions multiples. Les agents physiques et chimiques peuvent interagir à chaque étape des processus toxicocinétiques ou toxicodynamiques, entraînant trois effets possibles:
1. Indépendant. Chaque agent produit un effet distinct en raison d’une différence dans le mécanisme d’action. 2. Synergique. L’effet combiné est supérieur à celui de chacun des agents pris isolément. On distingue alors deux types d’effets: a) additif, lorsque l’effet combiné est égal à la somme des effets induits par chaque agent pris isolément; b) potentialisé, quand l’effet combiné est supérieur à la simple addition des effets individuels. 3. Antagoniste. L’effet combiné est inférieur à celui qui est induit par addition des effets individuels.
Les études concernant les effets combinés sont rares. Elles sont en effet très complexes en raison des nombreux facteurs et agents à prendre en compte.
En cas d’exposition à deux ou à plusieurs toxiques de manière simultanée ou consécutive, il convient donc d’envisager la possibilité que certains effets puissent se conjuguer et entraîner soit une augmentation, soit une diminution des processus toxicocinétiques.
L’ORGANE CIBLE ET LES EFFETS CRITIQUES
La toxicologie professionnelle et environnementale a pour principal objectif d’améliorer la prévention des risques dus à l’exposition à des agents nocifs, dans l’environnement général ou professionnel, ou de limiter de façon notoire leurs effets sur la santé. Des systèmes ont été mis au point qui permettent d’évaluer de manière quantitative le risque lié à une exposition donnée (voir l’article «La toxicologie et les réglementations en matière de sécurité et de santé»).
Les effets d’un produit chimique sur un système ou organe donné sont liés à l’intensité et au type d’exposition: aiguë ou chronique. Etant donné la diversité des effets toxiques pouvant survenir dans un système ou organe, on a adopté vis-à-vis des organes et des effets critiques une démarche générale qui permet d’évaluer le risque et d’établir des limites de concentration à visée sanitaire pour les substances toxiques présentes dans l’environnement.
Du point de vue de la médecine préventive, il est très important d’identifier les effets nocifs précoces, pour pouvoir prévenir ou limiter l’apparition de conséquences pour la santé plus graves encore.
C’est l’approche qui a été choisie pour les métaux lourds. Ces métaux, comme le cadmium, le mercure et le plomb, appartiennent à un groupe particulier de substances dont la toxicité chronique s’exerce par accumulation dans les organes. Un groupe de travail spécialisé dans la toxicité des métaux (Nordberg, 1976) a adopté à cet égard les définitions ci-dessous.
La définition de l’organe critique proposée par ce groupe de travail a été adoptée avec une légère modification, le terme métal ayant été remplacé par l’expression substance potentiellement toxique (Duffus, 1993).
Lorsqu’on décide de considérer qu’un organe ou un système donné est critique, on tient compte non seulement du mécanisme toxique du produit dangereux, mais également de la voie d’absorption et de la population exposée.
• la concentration cellulaire critique est la concentration à laquelle des lésions fonctionnelles, réversibles ou non, surviennent au niveau cellulaire; • la concentration critique dans l’organe est la concentration moyenne dans l’organe au moment où les cellules les plus sensibles de cet organe atteignent la concentration critique; • l’organe critique est l’organe où la concentration critique en métal est atteinte en premier lieu dans des conditions d’exposition et pour une population données; • l’effet critique est le point précis reliant la dose et l’effet chez un individu ou, plus précisément, le point auquel un dysfonctionnement cellulaire survient au niveau de l’organe critique. A une exposition inférieure à celle entraînant une concentration critique de métal dans l’organe critique, certains effets décelables par des tests, biochimiques en particulier, peuvent se produire sans léser le fonctionnement cellulaire. De tels effets sont appelés effets sous-critiques.
Du point de vue biologique, on ne connaît pas toujours la signification de l’effet sous-critique; il peut servir d’indice biologique d’exposition, d’indice d’adaptation ou d’effet critique précurseur (voir l’article «Les indicateurs biologiques»). Cette dernière possibilité peut avoir un intérêt prophylactique particulier.
Le tableau 33.1 donne des exemples d’organes et d’effets critiques pour différents produits chimiques. Lors de l’exposition chronique au cadmium d’origine environnementale, où la voie d’absorption est d’une importance secondaire (les concentrations de cadmium dans l’air vont de 10 à 20 µg/m3 en zone urbaine et de 1 à 2 µg/m3 en zone rurale), l’organe critique est le rein. Dans une entreprise où la valeur limite d’exposition est de 50 µg/m3, l’inhalation représente la principale voie d’exposition, les deux organes considérés comme critiques étant le poumon et le rein.
Tableau 33.1 Exemples d'organes et d'effets critiques
| Substance | Organe critique lors d’une exposition chronique | Effet critique | ||
| Cadmium | Poumons | Sans seuil : Cancer pulmonaire (risque unitaire 4,6 × 10⁻³) | ||
| Reins | Seuil : Excrétion urinaire accrue de protéines de faible poids moléculaire (ß2–M, RBP) | |||
| Poumons | Modifications fonctionnelles bénignes, emphysème | |||
| Plomb | Adultes Système hématopoïétique | Excrétion accrue d’acide δ-aminolévulinique urinaire (ALA-U); augmentation de la concentration en protoporphyrine libre érythrocytaire (PLE) | ||
| Système nerveux périphérique | Ralentissement des vitesses de conduction des fibres nerveuses les plus lentes | |||
| Mercure (élémentaire) | Jeunes enfants Système nerveux central | Diminution du QI et autres effets discrets; tremblement mercuriel (doigts, lèvres, paupières) | ||
| Mercure (mercurique) | Reins | Protéinurie | ||
| Manganèse | Adultes Système nerveux central | Altération des fonctions psychomotrices | ||
| Enfants Poumons | Symptômes respiratoires | |||
| Système nerveux central | Altération des fonctions psychomotrices | |||
| Toluène | Muqueuses | Irritation | ||
| Chlorure de vinyle | Foie | Cancer (angiosarcome, risque unitaire 1 × 10⁻⁶) | ||
| Acétate d’éthyle | Muqueuses | Irritation | ||
Avec le plomb, les organes critiques chez l’adulte sont le système hématopoïétique et le système nerveux périphérique, où les effets critiques (augmentation de la concentration en protoporphyrine érythrocytaire libre (PEL), augmentation de l’excrétion urinaire en acide delta-aminolévulinique, ou troubles de la conduction nerveuse périphérique) apparaissent lorsque le taux de plombémie (indice d’absorption systémique du plomb) avoisine 200 à 300µg/l. Chez le jeune enfant, où l’organe critique est le système nerveux central (SNC), des symptômes de dysfonctionnement, mis en évidence à l’aide de tests psychologiques, apparaissent dans les populations étudiées à des concentrations de l’ordre de 100 µg/l de plombémie.
D’autres définitions permettent de mieux expliciter la notion d’effet critique. Selon l’OMS (1989), l’effet critique correspond au premier effet nocif apparaissant lorsque le seuil (critique) de concentration ou de dose est atteint dans l’organe critique. Des effets nocifs comme le cancer, pour lequel aucune concentration seuil n’est définie, sont souvent considérés comme critiques. La décision de juger si un effet est critique ou non est affaire de spécialiste. Dans les lignes directrices du Programme international sur la sécurité des substances chimiques (PISSC) concernant l’établissement des documents appelés Environmental Health Criteria Documents, on définit l’effet critique comme étant l’effet nocif jugé le plus approprié pour déterminer la dose admissible. Cette définition a été formulée dans le but d’évaluer les limites d’exposition compatibles avec la santé dans l’environnement général. L’essentiel paraît donc d’établir quel effet doit être considéré comme nocif. Selon la terminologie actuelle, l’effet nocif est la modification de morphologie, physiologie, croissance, développement ou durée de vie d’un organisme résultant d’une moindre capacité à compenser un stress additionnel ou d’une augmentation de la sensibilité aux effets nocifs d’origine environnementale. Seul un expert est en mesure de juger si un effet est nocif ou non.
La figure 33.1 montre les courbes dose-réponse hypothétiques correspondant à divers effets. Lors d’une exposition au plomb, A représente un effet sous-critique (inhibition de l’ALA-déshydratase érythrocytaire), B l’effet critique (augmentation de la protoporphyrine zinc érythrocytaire ou de l’excrétion de l’acide δ-aminolévulinique), C l’effet clinique (anémie) et D l’issue fatale (décès). La dépendance existant entre les effets liés à l’exposition et la plombémie (témoin de la dose) sont évidents dans l’intoxication saturnine, aussi bien sous l’angle de la relation dose-réponse que pour les différentes variables (sexe, âge, etc.). L’établissement des effets critiques et de la relation dose-réponse pour ces effets chez l’humain permet de prévoir la fréquence d’un effet déterminé pour une dose donnée ou sa contrepartie (concentration dans le milieu biologique) dans une population donnée.
Figure 33.1 Courbes dose-réponse hypothétiques représentatives d'effets divers
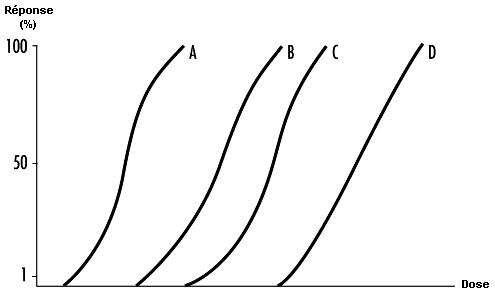
Les effets critiques peuvent être de deux types: ceux qui ont un seuil et ceux pour lesquels il existe un risque, quel que soit le niveau d’exposition (absence de seuil pour les cancérogènes génotoxiques et les mutagènes au niveau des cellules germinales). Chaque fois que possible, on doit évaluer le risque à partir de données humaines appropriées. Pour établir les seuils à appliquer à l’ensemble d’une population, des estimations du niveau d’exposition (dose admissible, indices biologiques d’exposition) doivent être faites, de sorte que la fréquence de l’effet critique dans la population exposée à un toxique donné corresponde à la fréquence de cet effet dans la population générale. Lors de l’exposition au plomb, la valeur maximale recommandée pour la plombémie dans la population générale (200 µg/l, médiane inférieure à 100 µg/l) (OMS, 1987) est pratiquement inférieure à la valeur seuil pour l’effet critique supposé — augmentation du taux de protoporphyrine érythrocytaire libre — mais cette valeur est supérieure à celle responsable des effets sur le SNC chez l’enfant ou sur la pression sanguine chez l’adulte. De façon générale, si des données obtenues à partir d’études bien conduites sur une population humaine permettent de définir un niveau pour lequel aucun effet nocif n’est observé et constituent une base d’évaluation de la sécurité, on considère qu’il convient d’appliquer un facteur d’incertitude de dix.
En cas d’exposition professionnelle, les effets critiques peuvent se référer à ceux observés dans une certaine proportion de la population (par exemple, 10%). Ainsi, lors d’une exposition saturnine en milieu de travail, le niveau de plombémie admissible à visée sanitaire recommandé chez les hommes a été fixé à 400 mg/l, en partant du principe que, pour une plombémie de l’ordre de 300 à 400 mg/l, on observe une excrétion de 5 mg/l d’ALA-U chez 10% d’entre eux. S’agissant de l’exposition professionnelle au cadmium (en admettant que l’augmentation de l’excrétion urinaire de protéines de faible poids moléculaire constitue l’effet critique), on a fixé à 200 ppm la valeur admissible pour ce métal dans le cortex rénal, car cet effet critique est observé chez 10% de la population exposée. Cependant, en 1996, de nombreux pays envisageaient d’abaisser ces valeurs.
Les avis divergent quant à la méthode à suivre pour évaluer le risque de produits chimiques pour lesquels l’effet critique n’a pas de seuil, comme les cancérogènes génotoxiques. Des approches basées essentiellement sur la mise en évidence d’une relation dose-réponse ont été adoptées pour évaluer de tels effets. Du fait de l’absence de consensus sociopolitique en ce qui concerne le risque cancérogène dans des documents tels que les Directives pour la qualité de l’air en Europe (OMS, 1987), seules les valeurs du type risque unitaire rapporté à la durée de vie (c’est-à-dire le risque associé à l’exposition durant toute la vie à 1 µg/m3 de produit dangereux) sont proposées pour les effets sans seuil (voir l’article «La toxicologie et les réglementations en matière de sécurité et santé»).
Actuellement, l’étape essentielle de l’évaluation d’un risque est la détermination de l’organe et de l’effet critiques. Les définitions de l’effet critique comme de l’effet nocif témoignent du choix de l’effet à considérer comme critique dans un organe ou un système donné, choix qui est ensuite directement lié à la détermination résultante de valeurs recommandées pour un produit chimique dans l’environnement général, par exemple, dans les Directives pour la qualité de l’air en Europe (OMS, 1987) ou celle de limites à visée sanitaire applicables aux expositions professionnelles (OMS, 1980). Il peut arriver en pratique qu’il soit impossible de dire quel est l’effet critique à partir d’une gamme d’effets sous-critiques et que les limites recommandées de concentrations pour des produits chimiques toxiques dans l’environnement général ou professionnel soient impossibles à respecter. Le fait, par exemple de considérer comme critique un effet susceptible d’inclure des effets cliniques précoces peut conduire à adopter des valeurs auxquelles des effets nocifs peuvent survenir dans une partie de la population. Décider si oui ou non un effet donné doit être considéré comme critique relève de la responsabilité de groupes d’experts spécialisés en toxicologie et en évaluation du risque.
LES EFFETS DE L’ÂGE, DU SEXE ET D’AUTRES FACTEURS
On observe souvent des différences importantes dans la manière dont les individus réagissent aux produits chimiques toxiques et parfois dans la façon dont un même individu y réagit aux différentes périodes de sa vie. Ces variations peuvent être attribuées à un grand nombre de facteurs susceptibles d’avoir une influence sur le taux d’absorption, la distribution dans l’organisme et le taux de biotransformation ou d’excrétion d’un produit chimique donné. Hormis les facteurs héréditaires qui sont connus pour avoir un lien évident avec la sensibilité aux toxiques chimiques chez l’humain (voir l’article «Les déterminants génétiques de la réponse toxique»), d’autres facteurs interviennent aussi parmi lesquels il faut citer l’âge et le sexe; un état pathologique préexistant ou la réduction fonctionnelle d’un organe (acquise); les habitudes alimentaires, le tabagisme, la consommation d’alcool et de médicaments; l’exposition concomitante à des toxines biologiques (micro-organismes) et à des facteurs physiques (rayonnements, humidité, températures très basses ou très élevées ou pressions barométriques ayant une influence particulière sur la pression partielle d’un gaz), de même que l’exercice physique ou le stress psychologique et, enfin, l’exposition préalable professionnelle ou environnementale à un produit chimique particulier, notamment l’exposition simultanée à d’autres produits chimiques non nécessairement toxiques (métaux essentiels, par exemple). La contribution possible de ces facteurs à la potentialisation ou à la diminution de la sensibilité aux effets nocifs, de même que les mécanismes d’action, varient selon le produit concerné. Par conséquent, seuls les facteurs les plus courants, les mécanismes de base et quelques exemples caractéristiques seront présentés ici, les informations spécifiques à un produit chimique particulier figurant dans une autre partie de la présente Encyclopédie.
Selon l’étape à laquelle ces facteurs interviennent (absorption, distribution, biotransformation ou excrétion d’un produit chimique particulier), on peut classer de façon schématique les mécanismes en fonction de deux types d’interaction essentiels: 1) une modification de la quantité de produit chimique au niveau de l’organe cible, c’est-à-dire au niveau de son (ses) site(s) d’effet dans l’organisme (interactions toxicocinétiques); 2) une modification de l’intensité de la réponse spécifique au produit chimique au niveau de l’organe cible (interactions toxicodynamiques). Les mécanismes les plus courants, quel que soit le type d’interaction, sont dus à la concurrence que se livrent les produits chimiques pour se lier au même constituant participant à leur transport dans l’organisme (protéines sériques spécifiques, par exemple) ou pour suivre la même voie de biotransformation (enzymes spécifiques, par exemple) aboutissant à une modification de la vitesse ou de la séquence entre la réaction initiale et l’effet nocif final. Cependant, des interactions à la fois toxicocinétiques et toxicodynamiques peuvent avoir une incidence sur la sensibilité individuelle à un produit chimique particulier. L’influence de plusieurs facteurs concomitants peut aboutir à: a) des effets additifs — l’intensité de l’effet combiné est égale à la somme des effets produits par chaque facteur séparément; b) des effets synergiques — l’intensité de l’effet combiné est supérieure à la somme des effets produits par chaque facteur séparément; c) des effets antagonistes — l’intensité de l’effet combiné est inférieure à la somme des effets produits par chaque facteur séparément.
La quantité d’un toxique ou d’un métabolite au niveau du site d’action dans l’organisme peut être évaluée approximativement par la surveillance biologique, qui consiste, par le choix du spécimen biologique adéquat et le moment optimal du prélèvement des échantillons, à prendre en compte les demi-vies biologiques d’un produit chimique donné à la fois dans l’organe critique et dans le compartiment biologique évalué. De façon générale, on manque toutefois d’informations fiables concernant les autres facteurs pouvant avoir une influence sur la sensibilité individuelle chez l’humain et, par conséquent, la majorité de nos connaissances repose sur des données expérimentales animales.
Il faut souligner qu’à niveau et durée d’exposition équivalents, l’être humain et les autres mammifères réagissent parfois de manière très différente à de nombreux toxiques; ainsi, l’humain paraît beaucoup plus sensible aux effets nocifs de plusieurs métaux toxiques que le rat (employé de façon courante dans les études expérimentales animales). Certaines de ces différences peuvent être attribuées au fait que les voies de transport, de distribution et de biotransformation de nombreux toxiques sont étroitement tributaires de variations minimes du pH tissulaire et de l’équilibre redox dans l’organisme (de la même manière que certaines activités enzymatiques). Ces disparités s’expliquent aussi par le fait que le système redox de l’être humain est très diffèrent de celui du rat.
Ces différences apparaissent clairement pour des antioxydants importants comme la vitamine C et le glutathion (GSH), essentiels au maintien de l’équilibre redox et qui, par leur rôle protecteur vis-à-vis des effets nocifs des radicaux libres dérivés de l’oxygène ou générés par des xénobiotiques, interviennent dans de nombreux états pathologiques (Kehrer, 1993). Contrairement au rat, l’être humain ne peut synthétiser la vitamine C et la teneur, de même que le taux de renouvellement du GSH érythrocytaire, sont beaucoup plus faibles chez celui-ci. Il présente aussi un déficit de certaines enzymes antioxydantes protectrices par rapport au rat et aux autres mammifères; (ainsi, la GSH-peroxydase est peu active dans le sperme humain). Ces exemples montrent bien que l’humain est beaucoup plus sensible au stress oxydatif (surtout dans les cellules sensibles, comme en témoigne la plus grande vulnérabilité du sperme humain aux toxiques, toujours par rapport au rat) et qu’il réagit de manière différente à divers facteurs auxquels il est d’ailleurs plus vulnérable que les autres mammifères (Telišman, 1995).
L’influence de l’âge
Comparés aux adultes, les très jeunes enfants sont souvent plus sensibles à la toxicité des substances chimiques en raison de leur volume d’inhalation relativement plus important, de leur taux d’absorption gastro-intestinale plus élevé du fait d’une plus grande perméabilité de leur épithélium intestinal, en raison aussi de l’immaturité de leurs systèmes de détoxication et d’un taux d’excrétion de produits chimiques relativement plus faible que chez l’adulte. Au début de son développement, le système nerveux central semble particulièrement sensible à la neurotoxicité de produits chimiques comme le plomb et le méthylmercure. Les sujets âgés, pour leur part, peuvent avoir été sensibilisés par des expositions antérieures responsables du stockage corporel de certains xénobiotiques ou d’une insuffisance fonctionnelle d’organes cibles ou d’activités enzymatiques, qui aboutissent à une altération des processus de détoxication et d’excrétion. Chacun de ces facteurs peut contribuer à l’affaiblissement des défenses de l’organisme et à une diminution de ses réserves, expliquant une sensibilité accrue à l’exposition ultérieure à d’autres risques. Par exemple, les enzymes du cytochrome P450 (intervenant dans la biotransformation de la plupart des produits chimiques toxiques) peuvent être induites ou inhibées sous l’influence d’un certain nombre de facteurs tout au long de la vie (dont les habitudes alimentaires, le tabagisme, l’alcool, la consommation de médicaments et l’exposition à des xénobiotiques environnementaux).
L’influence du sexe
Des différences de sensibilité liées au sexe ont été décrites pour un grand nombre de produits chimiques toxiques (environ 200), différences qui se retrouvent dans de nombreuses espèces de mammifères. Les mâles sont généralement plus sensibles aux substances néphrotoxiques et les femelles aux substances hépatotoxiques. Cette différence entre mâles et femelles est non seulement liée à l’existence de disparités physiologiques (par exemple, les femelles éliminent davantage certains toxiques par voie menstruelle, par le lait maternel ou par transfert au fœtus; toutefois, elles sont soumises à un stress supplémentaire lors de la gestation, de la parturition et de la lactation), mais elle est due aussi à des disparités dans les activités enzymatiques, les mécanismes de réparation génétique, les facteurs hormonaux, ou encore à la présence chez les femelles de réserves lipidiques plus importantes, réserves responsables d’une plus grande accumulation de toxiques lipophiles, tels que les solvants organiques et certains médicaments.
L’influence des habitudes alimentaires
Les habitudes alimentaires ont une influence importante sur la sensibilité aux toxiques, un état nutritionnel satisfaisant étant essentiel au bon fonctionnement des systèmes de défense de l’organisme vis-à-vis de ces substances. Un apport équilibré en oligoéléments (y compris les métalloïdes) et en protéines, en particulier les acides aminés soufrés, assure la biosynthèse des enzymes détoxifiantes et la fourniture de glycine et de glutathion indispensable aux réactions de conjugaison avec les composés endogènes et exogènes. Les lipides, en particulier les phospholipides, et les lipotropes (donneurs de groupements méthyles) sont nécessaires à la synthèse des membranes biologiques. Les glucides apportent l’énergie qu’exigent les processus de détoxification et fournissent l’acide glucuronique pour la conjugaison des toxiques et de leurs métabolites. Le sélénium (métalloïde essentiel), le glutathion et les vitamines telles que la vitamine C (hydrosoluble), la vitamine E et la vitamine A (liposolubles), assument le rôle important d’antioxydants (contrôle de la lipidoperoxydation et maintien de l’intégrité des membranes cellulaires) et de piégeurs de radicaux libres produits par certains toxiques. De plus, certains constituants alimentaires (protéines, fibres, minéraux, phosphates, acide citrique, etc.), de même que le volume alimentaire, peuvent avoir des répercussions non négligeables sur l’absorption gastro-intestinale de nombreux toxiques (ainsi, l’absorption moyenne des sels solubles de plomb consommés avec l’alimentation est d’environ 8%, alors qu’elle est de 60% chez le sujet à jeun). Par ailleurs, le régime alimentaire peut être également une source d’exposition individuelle supplémentaire à divers toxiques (on constate, par exemple, chez les sujets consommant des fruits de mer contaminés, une augmentation considérable des apports journaliers en arsenic, mercure, cadmium ou plomb responsables d’une accumulation).
L’influence du tabagisme
Le tabagisme peut avoir une incidence sur la sensibilité à de nombreux toxiques en raison des interactions dues aux multiples composants présents dans la fumée de cigarette (en particulier hydrocarbures polycycliques aromatiques, monoxyde de carbone, benzène, nicotine, acroléine, certains pesticides, cadmium, et, dans une moindre mesure, plomb et autres métaux toxiques, etc.). Certains d’entre eux peuvent s’accumuler dans l’organisme tout au long de la vie, y compris durant la période prénatale (plomb et cadmium, par exemple). Les interactions ont lieu surtout au niveau du transport et de la distribution et à celui de la biotransformation à cause respectivement de la concurrence vis-à-vis des sites de liaison et vis-à-vis des enzymes qui interviennent. Ainsi, certains constituants de la fumée de cigarette peuvent induire les enzymes du cytochrome P450, alors que d’autres peuvent les inhiber, d’où une perturbation des mécanismes de biotransformation utilisés par de nombreux autres toxiques, comme les solvants organiques et certains médicaments. Une consommation importante de cigarettes sur une période prolongée peut donc affaiblir considérablement les mécanismes de défense de l’organisme en diminuant les réserves nécessaires pour faire face aux effets nocifs des autres facteurs du mode de vie.
L’influence de l’alcool
La consommation d’alcool (éthylique) influence de diverses manières la sensibilité à de nombreux toxiques. Elle a une incidence sur l’absorption et la distribution de certains produits chimiques dans l’organisme (augmentation de l’absorption gastro-intestinale du plomb, ou encore diminution de l’absorption pulmonaire du mercure inhalé à l’état de vapeur en inhibant son oxydation nécessaire à sa rétention). L’éthanol peut également conditionner la sensibilité à divers produits chimiques en modifiant à court terme le pH tissulaire et en faisant augmenter le potentiel redox, par son métabolisme: l’oxydation de l’éthanol en acétaldéhyde, puis en acétate, produit en effet des formes réduites de nicotinamide adénine dinucléotide (NADH) et de l’hydrogène (H+). Etant donné que l’affinité de liaison tissulaire des métaux essentiels ou toxiques et des métalloïdes dépend du pH et des modifications de potentiel redox (Telišman, 1995), un apport même modéré d’éthanol peut avoir de multiples conséquences: 1) redistribution du plomb accumulé depuis longtemps dans l’organisme sous une forme inactive vers une forme active biologiquement; 2) remplacement du zinc essentiel par du plomb au niveau des enzymes contenant du zinc, modifiant ainsi l’activité enzymatique, ou influence du plomb mobilisé sur la distribution d’autres métaux et métalloïdes essentiels pour l’organisme tels que le calcium, le cuivre, le fer ou le sélénium; 3) augmentation de l’excrétion urinaire du zinc, etc. Ces effets peuvent aussi être accentués en raison de la quantité appréciable de plomb que les boissons alcoolisées peuvent renfermer à cause des contenants dans lesquels ils sont conservés ou du procédé de fabrication employé (Prpić-Majić et coll., 1984; Telišman et coll., 1984, 1993).
Autre raison courante des modifications de sensibilité liées à l’éthanol: le fait que de nombreux toxiques, des solvants organiques, par exemple, utilisent une voie de biotransformation faisant intervenir les mêmes enzymes du cytochrome P450. Selon l’intensité de l’exposition aux solvants organiques, la quantité et la fréquence de l’ingestion alcoolique (consommation aiguë ou chronique), l’éthanol peut soit ralentir, soit accélérer les vitesses de biotransformation des divers solvants organiques et modifier ainsi leur toxicité (Sato, 1991).
L’influence des médicaments
La consommation de médicaments peut elle aussi avoir une influence sur la sensibilité aux toxiques. Un bon nombre d’entre eux, en se liant en effet aux protéines sériques, déterminent les conditions du transport, de la distribution ou de l’excrétion de substances toxiques, et peuvent induire ou inhiber les enzymes détoxifiantes (enzymes du cytochrome P450, notamment), modifiant ainsi la toxicité des produits chimiques qui utilisent la même voie de biotransformation. L’augmentation de l’excrétion urinaire de l’acide trichloroacétique (métabolite de plusieurs hydrocarbures chlorés) après consommation de salicylés, de sulfamides ou de phénylbutazone, ou l’augmentation de l’hépato-néphrotoxicité du tétrachlorure de carbone après consommation de phénobarbital, sont caractéristiques de chacun de ces mécanismes. De plus, certains médicaments contiennent des produits chimiques potentiellement toxiques en quantité appréciable. Ainsi, les antiacides ou les préparations utilisées pour le traitement thérapeutique de l’hyperphosphatémie survenant lors d’une insuffisance rénale chronique renferment de l’aluminium.
L’influence de l’exposition simultanée à d’autres produits chimiques
Les modifications de la sensibilité consécutives aux interactions entre plusieurs produits chimiques (effets additifs, synergiques ou antagonistes possibles) ont surtout été étudiées chez l’animal, en particulier chez le rat. On ne dispose pas d’études épidémiologiques ou cliniques sérieuses sur la question. Cette constatation n’est pas sans conséquence quand on sait que les produits toxiques provoquent des réponses plus intenses et des effets nocifs plus divers chez l’être humain que chez le rat et les autres mammifères. La plupart des données dont on dispose, en dehors de celles publiées dans le domaine pharmacologique, concernent uniquement l’association de deux produits chimiques différents appartenant à des groupes de substances spécifiques, par exemple des pesticides, des solvants organiques, ou des métaux et métalloïdes essentiels ou toxiques.
L’exposition combinée à des solvants organiques peut provoquer des effets additifs, synergiques ou antagonistes (en fonction des associations de solvants organiques, de l’intensité et de la durée de l’exposition) dus essentiellement à leurs influences réciproques sur les processus de biotransformation (Sato, 1991).
Autre exemple caractéristique: les interactions des métaux et métalloïdes essentiels avec les agents toxiques, car elles peuvent varier en fonction de l’âge (par exemple, accumulation corporelle tout au long de la vie du plomb et du cadmium d’origine environnementale), du sexe (manque de fer habituel chez la femme), des habitudes alimentaires (apport alimentaire excessif en métaux et métalloïdes toxiques, ou apport alimentaire insuffisant en métaux et métalloïdes essentiels), des habitudes tabagiques et de la consommation d’alcool (exposition au cadmium, au plomb et à d’autres métaux toxiques, etc.), et de la consommation de médicaments (une seule dose d’antiacide pouvant, par exemple, accroître d’un facteur de 50 l’apport journalier moyen en aluminium d’origine nutritionnelle). Le tableau 33.2 illustre les diverses possibilités d’effets additifs, synergiques ou antagonistes qui peuvent survenir lors d’une exposition à des métaux et métalloïdes chez l’humain. On constate que des interactions supplémentaires peuvent se produire lorsque des éléments essentiels entrent en interaction les uns avec les autres: il faut signaler ici l’effet antagoniste bien connu du cuivre sur l’absorption gastro-intestinale et le métabolisme du zinc, et vice versa. Le mécanisme essentiel de ces interactions est la concurrence que se livrent les métaux et métalloïdes pour le même site de liaison (surtout le groupement thiol-SH) au niveau de diverses enzymes, des métalloprotéines (surtout la métallothionéine) et des tissus (membranes cellulaires et barrières entre organes). Ces interactions peuvent jouer un rôle significatif dans le développement de maladies chroniques par suite de l’action des radicaux libres et du stress oxydatif (Telišman, 1995).
Tableau 33.2 Effets importants des nombreuses interactions possibles
|
Métal ou métalloïde toxiques |
Effets importants de l’interaction avec un autre métal ou métalloïde | ||
| Aluminium (Al) | Fait diminuer l’absorption du Ca et en modifie le métabolisme; un régime alimentaire carencé en Ca accroît le taux d’absorption de l’Al. Modifie le métabolisme des phosphates. Données équivoques sur les interactions avec Fe, Zn et Cu (rôle possible d’un autre métal comme médiateur).
|
||
| Arsenic (As) | Affecte la distribution du Cu (augmentation du Cu dans les reins et diminution dans le foie, le sérum et l’urine). Modifie le métabolisme du Fe (augmentation du Fe dans le foie avec diminution concomitante de l’hématocrite). Zn réduit l’absorption de l’As inorganique et atténue la toxicité de l’As. Se fait diminuer la toxicité de l’As et vice versa
|
||
| Cadmium (Cd) | Limite l’absorption du Ca et en modifie le métabolisme; un régime alimentaire carencé en Ca fait augmenter l’absorption du Cd. Modifie le métabolisme des phosphates (augmente leur excrétion urinaire). Modifie le métabolisme du Fe; un régime alimentaire carencé en Fe fait augmenter l’absorption du Cd. Affecte la distribution du Zn; Zn réduit la toxicité du Cd, tandis que son influence sur l’absorption du Cd est équivoque. Se réduit la toxicité du Cd. Mn réduit la toxicité du Cd lors d’une exposition de faible niveau au Cd. Données équivoques sur les interactions avec Cu (rôle possible du Zn, ou d’un autre métal, comme médiateur). Concentrations élevées de Pb, Ni, Sr, Mg ou Cr(III) dans les aliments peuvent faire diminuer l’absorption du Cd
|
||
| Mercure (Hg) | Affecte la distribution du Cu (augmentation du Cu dans le foie). Zn réduit l’absorption du Hg inorganique et la toxicité du Hg. Se atténue la toxicité du Hg. Cd fait augmenter la concentration rénale du Hg, tout en faisant diminuer la toxicité rénale du Hg (synthèse de métallothionéine induite par Cd).
|
||
| Plomb (Pb) | Modifie le métabolisme du Ca; un régime alimentaire carencé en Ca fait augmenter l’absorption du Pb inorganique et la toxicité du Pb. Modifie le métabolisme du Fe; un régime carencé en Fe accroît la toxicité du Pb, tandis que son influence sur l’absorption du Pb est équivoque. Modifie le métabolisme du Zn et augmente l’excrétion urinaire du Zn; un régime alimentaire carencé en Zn fait augmenter l’absorption du Pb inorganique et la toxicité du Pb. Se fait diminuer la toxicité du Pb. Données équivoques sur les interactions avec Cu et Mg (rôle possible du Zn, ou d’un autre métal, comme médiateur).
|
||
Note : les données sont obtenues principalement à partir d’études expérimentales chez le rat, les données cliniques et épidémiologiques pertinentes (en particulier sur les relations quantitatives dose-réponse) faisant généralement défaut (Elsenhans et coll., 1991; Fergusson,1990; Telišman et coll., 1993).
LES DÉTERMINANTS GÉNÉTIQUES DE LA RÉPONSE TOXIQUE
On sait depuis longtemps que chaque individu réagit différemment aux produits chimiques présents dans l’environnement. L’explosion récente de la biologie moléculaire et de la génétique a favorisé une meilleure compréhension des causes moléculaires d’une telle variabilité. Les facteurs déterminants de cette réponse individuelle aux produits chimiques incluent les différences importantes existant au niveau d’une dizaine de superfamilles d’enzymes, baptisées enzymes métabolisant les xénobiotiques (étrangers à l’organisme) ou enzymes métabolisant les médicaments. Bien qu’on leur ait longtemps prêté un pouvoir détoxifiant, on sait maintenant que ces enzymes sont également capables de transformer de nombreux composés inertes en intermédiaires fortement toxiques. On a pu identifier récemment, au niveau des gènes codant pour ces enzymes, des différences légères ou importantes, responsables de disparités marquées de leur activité enzymatique. Il est maintenant établi que chaque individu possède un effectif d’activités enzymatiques métabolisant les xénobiotiques qui lui est propre, cette diversité pouvant être assimilée à une «empreinte métabolique».
C’est l’interaction complexe de ces nombreuses superfamilles d’enzymes qui détermine non seulement le devenir d’un produit chimique chez un individu donné et son potentiel de toxicité, mais également l’évaluation de l’exposition. Dans cet article, nous avons choisi la superfamille des enzymes du cytochrome P450 pour illustrer les remarquables progrès accomplis dans la compréhension de la réponse individuelle aux produits chimiques. Le développement de tests ADN relativement simples identifiant les altérations des gènes spécifiques de ces enzymes permet maintenant de prévoir de façon plus exacte la réponse individuelle à l’exposition à un produit chimique. On peut espérer que ces tests conduiront au développement de la toxicologie préventive. Chaque individu pourrait ainsi connaître les produits chimiques auxquels il serait particulièrement sensible, ce qui lui éviterait de s’exposer à des produits dont on ne soupçonnait pas auparavant qu’ils aient chez lui des effets toxiques, voire cancérogènes.
L’être humain est exposé tous les jours, bien souvent à son insu, à une multitude de produits chimiques. Beaucoup de ces produits extrêmement toxiques proviennent de sources très diverses, environnementales ou alimentaires. La relation entre ces expositions et la santé humaine a été, et continue d’être, un des principaux objectifs de la recherche biomédicale dans le monde.
Les exemples de ce véritable bombardement de produits chimiques ne manquent pas. Plus de 400 agents ont été mis en évidence dans le vin rouge et identifiés. La cigarette ne produit pas moins de 1 000 espèces chimiques différentes et les produits cosmétiques et savons parfumés renferment un nombre incalculable de produits chimiques. Dans l’agriculture, la situation n’est pas différente: pour traiter les terres cultivées aux Etats-Unis, on utilise tous les ans plus de 75 000 agents chimiques sous forme de pesticides, d’herbicides et d’engrais; ces produits sont captés par les plantes et les herbivores, ou les poissons dans les eaux environnantes, avant d’être ingérés par l’être humain qui se trouve à la fin de la chaîne alimentaire. Cette liste ne serait pas complète sans qu’on y ajoute deux autres sources importantes de produits chimiques: a) les médicaments consommés de façon prolongée; b) les substances dangereuses auxquelles les travailleurs sont exposés au cours de la vie active.
Il est maintenant établi que l’exposition aux produits chimiques peut avoir de nombreux effets nocifs sur la santé humaine et entraîner l’apparition de maladies chroniques et de bien des cancers. Des travaux effectués ces dix dernières années ont permis de mieux comprendre la base moléculaire de ces relations. Ils ont aussi permis de prendre conscience des différences individuelles de sensibilité aux effets nocifs des produits chimiques.
Les efforts actuels pour prévoir la réponse de l’humain à une exposition à un produit chimique associent deux démarches fondamentales (voir figure 33.2): surveillance de l’exposition humaine à l’aide de marqueurs biologiques (biomarqueurs) et prévision de la réaction probable d’un individu à un niveau d’exposition donné. Ces deux approches, pour importantes qu’elles soient, n’en sont pas moins très différentes l’une de l’autre. Le présent article porte sur les facteurs génétiques à l’origine de la sensibilité individuelle à l’exposition aux produits chimiques. Ce champ de recherche porte le nom général d’écogénétique ou de pharmacogénétique (Kalow, 1962, 1992). Si des progrès ont été réalisés récemment dans la mise en évidence des sensibilités individuelles à une toxicité chimique, c’est qu’on comprend maintenant mieux les mécanismes qui permettent à l’humain et aux autres mammifères de détoxifier tous ces produits et qu’on a une meilleure connaissance de la remarquable complexité des systèmes enzymatiques entrant en jeu.
Figure 33.2 Corrélations entre l'évaluation de l'exposition, les différences ethniques, l'âge, le régime, l'alimentation et l'évaluation
de la prédisposition génétique — différents facteurs jouant un rôle dans le risque individuel de toxicité ou de cancer
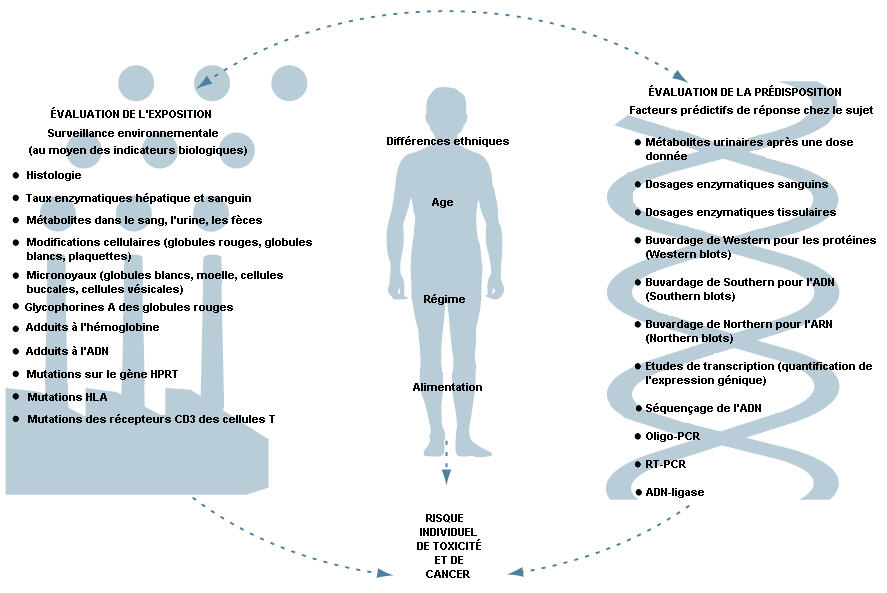
Nous expliquerons dans un premier temps comment les réponses toxiques varient d’un être humain à l’autre, avant de présenter quelques-unes des enzymes responsables d’une telle variabilité, liée à des différences de métabolisme des xénobiotiques. Ensuite, nous dresserons l’historique et la nomenclature de la superfamille des cytochromes P450 et nous décrirons brièvement cinq polymorphismes du P450 humain et plusieurs polymorphismes non liés au P450, responsables de différences de réponse toxique chez l’humain. Puis, à la lumière d’un exemple, nous montrerons comment les différences génétiques individuelles peuvent se répercuter sur l’exposition établie par contrôle d’ambiance. En dernier lieu, nous traiterons du rôle des enzymes métabolisant les xénobiotiques au niveau de fonctions vitales critiques.
La variation de la réponse toxique dans la population humaine
Les toxicologues et les pharmacologues ont coutume de parler de DL50, de DMA50 et de DE50 pour désigner respectivement, dans le cas d’un médicament donné, la dose létale, la dose maximale admissible et la dose efficace dans 50% d’une population. On peut se demander ce que ces doses signifient pour chacun de nous en tant qu’individu. Ce qu’on entend par là, c’est qu’un individu très sensible peut être 500 fois plus affecté ou avoir 500 fois plus de chances d’être affecté que le sujet le plus résistant d’une population donnée; dans l’absolu, les valeurs de DL50 (et de DMT50 ou de DE50) ne veulent pas dire grand-chose, elles n’ont un sens qu’en référence à une population.
La figure 33.3 illustre la relation dose-réponse hypothétique observée chez des individus appartenant à une population donnée exposée à un toxique. Ce diagramme général pourrait représenter un carcinome bronchique en fonction du nombre de cigarettes fumées, une acné chlorique par rapport à la concentration de dioxine présente sur le lieu de travail, un asthme en fonction des concentrations de l’air en ozone ou en aldéhyde, un érythème solaire par rapport aux rayons ultraviolets, la diminution du temps de coagulation en fonction de la consommation d’aspirine, ou encore la souffrance gastro-intestinale en réaction à la quantité de poivre jalapeño consommée. Généralement, pour chacun de ces cas, plus l’exposition est importante, plus la réponse toxique est intense. La majorité de la population présentera une réponse toxique moyenne avec son écart-type en fonction de la dose. Le sujet «hyperrésistant» (en bas à droite dans la figure 33.3) est celui qui répond le moins aux expositions ou aux doses plus élevées, le sujet «hypersensible» (en haut à gauche) étant celui qui répond de façon excessive à une exposition ou à une dose relativement faibles. Ces sujets hors norme, réagissant de manière très différente par rapport à la majorité des individus de la population, représentent des variants génétiques importants qui peuvent aider les scientifiques à comprendre les mécanismes moléculaires sous-jacents responsables de la réponse toxique.
Figure 33.3 Relation générale entre réponse toxique et dose pour tout agent chimique
ou physique présent dans l'environnement
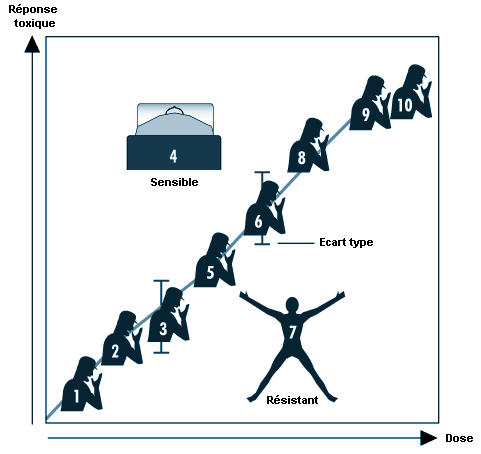
Grâce à ces sujets d’exception et dans le cadre d’études familiales, les scientifiques d’un certain nombre de laboratoires ont pris conscience de l’importance de l’hérédité mendélienne dans la réponse à un toxique donné. Ils ont ensuite pu faire appel à la biologie moléculaire et à la génétique pour mettre en évidence le mécanisme sous-jacent au niveau génétique (génotype) responsable de l’affection provoquée par l’environnement (phénotype).
Les enzymes métabolisant les xénobiotiques ou les médicaments
Comment l’organisme répond-il à la multitude de produits chimiques exogènes auxquels il est exposé? L’être humain et les autres mammifères ont développé des systèmes enzymatiques très complexes comportant plus d’une dizaine de superfamilles d’enzymes. Tous les produits chimiques auxquels l’humain est exposé ou presque subissent une modification enzymatique qui favorise ensuite leur élimination en dehors de l’organisme. Ces enzymes sont souvent appelées de façon globale enzymes métabolisant les médicaments ou enzymes métabolisant les xénobiotiques. En fait, l’un comme l’autre de ces termes sont impropres et ce pour deux raisons. Premièrement, un bon nombre de ces enzymes métabolisent non seulement les médicaments, mais aussi des centaines de milliers de produits chimiques présents dans l’environnement et dans les aliments. Deuxièmement, toutes ces enzymes ont également comme substrat des composés endogènes normaux et aucune d’entre elles ne métabolise uniquement des produits chimiques étrangers.
Depuis plus de quatre décennies, les processus métaboliques (à médiation enzymatique) dépendant de ces enzymes sont classés en réactions de phase I ou de phase II (voir figure 33.4). Les réactions de phase I («fonctionnalisation») correspondent généralement à des modifications structurales assez peu importantes du produit chimique parent par des réactions d’oxydation, de réduction ou d’hydrolyse permettant l’obtention d’un métabolite plus hydrosoluble. Les réactions de phase I fournissent une «clé» sans laquelle les modifications ultérieures du composé par les réactions de phase II ne peuvent pas se faire. Les réactions de phase I sont principalement gérées par une superfamille d’enzymes hautement polyvalentes, appelées cytochromes P450, bien que d’autres superfamilles d’enzymes puissent également intervenir (voir figure 33.5).
Figure 33.4 Présentation classique des enzymes de phase I et de phase II du métabolisme
des médicaments ou des xénobiotiques
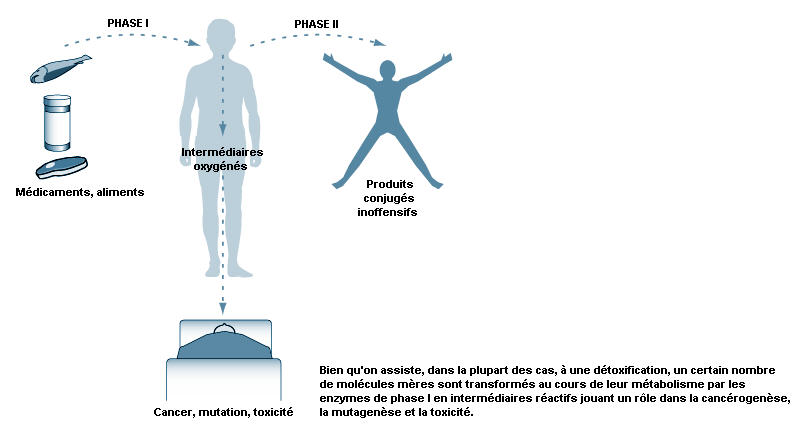
Figure 33.5 Exemples d'enzymes métabolisant les médicaments
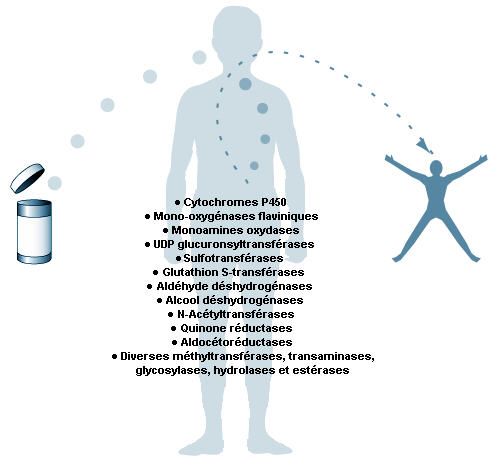
Les réactions de phase II supposent le couplage d’une molécule endogène hydrosoluble à un produit chimique (produit chimique initial ou métabolite de phase I) afin d’en faciliter l’excrétion. On appelle souvent les réactions de phase II réactions de «conjugaison» ou de «dérivation». Les superfamilles enzymatiques catalysant les réactions de phase II sont habituellement désignées selon le type de molécule endogène impliquée dans la réaction de conjugaison: acétylation par les N-acétyltransférases, sulfoconjugaison par les sulfotransférases, conjugaison du glutathion par les glutathion-transférases et glucuronidation par les UDP glucuronosyltransférases (voir figure 33.5). Le foie est le principal organe du métabolisme des xénobiotiques, bien qu’on trouve aussi certaines enzymes participant à leur métabolisme à un taux assez élevé dans le tractus gastro-intestinal, les gonades, le poumon, le cerveau et les reins, ainsi qu’en plus ou moins grande quantité dans toute cellule vivante.
Les enzymes métabolisant les xénobiotiques: une arme à double tranchant
Avec le progrès des connaissances sur les processus chimiques et biologiques conduisant à des manifestations pathologiques, on s’est peu à peu rendu compte que les enzymes métabolisant les xénobiotiques ont un mode de fonctionnement ambivalent (voir figure 33.4). Le plus souvent, les produits chimiques liposolubles sont transformés en métabolites hydrosolubles plus faciles à excréter. Cependant, il arrive aussi que ces mêmes enzymes transforment des produits chimiques inertes en molécules intermédiaires hautement réactives. Ces intermédiaires peuvent réagir avec des macromolécules cellulaires telles que les protéines et l’ADN. Ainsi, pour chaque produit chimique auquel l’être humain est exposé, deux voies compétitives potentielles coexistent, celle de l’activation métabolique et celle de la détoxification.
Une brève revue de génétique
En génétique humaine, chaque gène (locus) est localisé sur l’une des 23 paires de chromosomes. Les deux allèles (un présent sur chaque chromosome de la paire) peuvent être identiques, mais ils peuvent aussi être différents l’un de l’autre. Par exemple, les allèles B et b, où B (yeux marron) est dominant par rapport à b (yeux bleus): les individus de phénotype yeux marron peuvent avoir comme génotype soit BB soit Bb, alors que les individus de phénotype yeux bleus peuvent seulement avoir le génotype bb.
Un polymorphisme correspond à la présence de deux ou de plusieurs phénotypes héréditaires stables (traits) ayant pour origine le(s) même(s) gène(s) qui se maintiennent dans la population, souvent pour des raisons peu évidentes. Pour qu’un gène soit polymorphe, il faut que son produit ne soit pas essentiel au développement, à la reproduction ou à d’autres processus vitaux critiques. En fait, on a pris l’habitude d’expliquer par ce phénomène de «polymorphisme équilibré», où l’hétérozygote a un avantage net de survie sur l’homozygote (par exemple, résistance à la malaria et allèle de l’hémoglobine drépanocytaire), la présence dans la population d’un allèle dont la fréquence élevée serait autrement inexplicable (Gonzalez et Nebert, 1990).
Les polymorphismes humains des enzymes métabolisant les xénobiotiques
Les différences génétiques du métabolisme des médicaments et produits chimiques environnementaux sont connues depuis plus d’une quarantaine d’années (Kalow, 1962, 1992). Ces différences sont souvent appelées polymorphismes pharmacogénétiques ou, de façon plus générale, écogénétiques. Ces polymorphismes représentent des allèles variants survenant à des fréquences relativement élevées dans la population et généralement associés à des aberrations d’expression ou de fonction enzymatique. Par le passé, les polymorphismes ont bien souvent été mis en évidence à la suite de réponses inattendues à des agents thérapeutiques. Plus récemment, la technologie de l’ADN recombinant a permis aux scientifiques d’identifier les altérations génétiques précises responsables de certains polymorphismes. Ces polymorphismes sont maintenant caractérisés pour de nombreuses enzymes du métabolisme des xénobiotiques, y compris celles de phase I et de phase II. Au fur et à mesure qu’on découvre de nouveaux polymorphismes, on s’aperçoit que chaque individu possède un effectif distinct d’enzymes métabolisant les xénobiotiques. On peut dire de cette diversité qu’elle constitue son «empreinte métabolique» et que la réponse particulière de chaque individu à un produit chimique dépend de l’interaction complexe des superfamilles d’enzymes responsables du métabolisme des xénobiotiques (Kalow, 1962, 1992; Nebert, 1988; Gonzalez et Nebert, 1990; Nebert et Weber, 1990).
L’expression des enzymes humaines métabolisant les xénobiotiques en culture cellulaire
Comment améliorer la qualité des facteurs de prédiction des réponses humaines aux produits chimiques toxiques? Les progrès de nos connaissances sur les systèmes enzymatiques intervenant dans le métabolisme des médicaments doivent nous permettre de comprendre de manière précise quelles sont les enzymes qui déterminent le devenir métabolique de tout produit chimique. Les données recueillies à partir d’études expérimentales chez les rongeurs ont certainement fourni à cet égard des informations utiles. Cependant, des différences interespèces importantes au niveau des enzymes métabolisant les xénobiotiques appellent à la prudence dans l’extrapolation des données animales aux populations humaines. Pour pallier cette difficulté, de nombreux laboratoires ont mis au point des systèmes qui utilisent diverses lignées cellulaires en culture produisant des enzymes humaines fonctionnelles, stables et en forte concentration (Gonzalez, Crespi et Gelboin, 1991). De telles enzymes ont ainsi été produites à partir de bactéries, de levures, d’insectes ou de mammifères.
Afin de mieux préciser le métabolisme des produits chimiques, des systèmes multienzymatiques ont été également développés avec succès dans une lignée cellulaire unique (Gonzalez, Crespi et Gelboin, 1991). Ces lignées cellulaires fournissent des renseignements précieux sur les enzymes participant à la transformation métabolique d’un composé donné et des métabolites éventuellement toxiques. Si cette information peut être ensuite recoupée avec la présence et la concentration d’une enzyme au niveau des tissus humains, elle devrait permettre de prévoir une réponse de façon fiable.
Le cytochrome P450
Histoire et nomenclature
La superfamille des cytochromes P450 est l’une des superfamilles d’enzymes du métabolisme des médicaments qui a été le plus étudiée, en raison des disparités individuelles importantes qui caractérisent la réponse aux produits chimiques. Le terme cytochrome P450 est une désignation générique commode, employée pour définir cette grande superfamille d’enzymes essentielles au métabolisme d’innombrables substrats endogènes et exogènes. Il a été utilisé la première fois en 1962 pour décrire un pigment cellulaire inconnu qui, une fois réduit et lié au monoxyde de carbone, a produit un pic d’absorption caractéristique à 450 nm. Depuis le début des années quatre-vingt, la technologie du clonage d’ADNc a permis d’avoir un remarquable aperçu de la multiplicité des enzymes du cytochrome P450. Actuellement, plus de 400 gènes distincts du cytochrome P450 ont été identifiés chez les animaux, les plantes, les bactéries et les levures. On estime que toute espèce de mammifères, l’humain par exemple, possède pas moins de 60 gènes différents de P450 (Nebert et Nelson, 1991). Cette multiplicité a exigé la mise au point d’une nomenclature normalisée (Nebert et coll., 1987; Nelson et coll., 1993). Proposé pour la première fois en 1987 et mis à jour deux fois par an, ce système de nomenclature est basé sur la comparaison des séquences d’amino-acides entre les protéines de cytochrome P450. Les gènes du P450 sont divisés en familles et en sous-familles: les enzymes à l’intérieur d’une famille et celles à l’intérieur d’une même sous-famille présentent respectivement une similitude en acides aminés de plus de 40% et de 55%. Les gènes du P450 sont caractérisés par un symbole commun, CYP, suivi d’un chiffre arabe désignant la famille P450, puis d’une lettre spécifiant la sous-famille et d’un autre chiffre arabe propre au gène individuel (Nelson et coll. 1993; Nebert et coll. 1991). Ainsi, CYP1A1 représente le gène P450 1 dans la famille 1, sous-famille A.
En février 1995, la base de données du cytochrome P450 comportait 403 gènes CYP, répartis en 59 familles et 105 sous-familles. Les familles sont au nombre de 8 pour les eucaryotes inférieurs, 15 pour les plantes et 19 pour les bactéries. Les 15 familles de gènes P450 humains comprennent 26 sous-familles; 22 d’entre elles ont été localisées au niveau chromosomique. Certaines séquences sont nettement orthologues pour de nombreuses espèces: un gène CYP17 (stéroïde 17α-hydroxylase) a été identifié chez tous les vertébrés examinés jusqu’à ce jour; d’autres séquences à l’intérieur d’une sous-famille sont fortement dupliquées, ce qui rend l’identification des paires orthologues impossible (cas de la sous-famille CYP2C). Curieusement, l’humain et la levure partagent un gène orthologue dans la famille CYP51. Pour les lecteurs cherchant des informations complémentaires sur la superfamille des cytochromes P450, il existe de nombreux ouvrages très bien documentés (Nelson et coll., 1993; Nebert et coll., 1991; Nebert et McKinnon, 1994; Guengerich 1993; Gonzalez 1992).
Le succès du système de nomenclature des P450 a entraîné le développement de systèmes terminologiques semblables pour les UDP glucuronosyltransférases (Burchell et coll., 1991) et les mono-oxygénases à flavine (Lawton et coll., 1994). Des systèmes de nomenclature similaires sont également en cours de développement pour d’autres superfamilles d’enzymes métabolisant les médicaments (sulfotransférases, époxyde hydrolases et aldéhyde déshydrogénases, par exemple).
Récemment, la superfamille des gènes P450 des mammifères a été divisée en trois groupes (Nebert et McKinnon, 1994): ceux qui interviennent surtout dans le métabolisme des xénobiotiques et ceux qui participent à la synthèse de diverses hormones stéroïdes d’une part, et à d’autres fonctions endogènes importantes, de l’autre. Ce sont les enzymes du P450 métabolisant les xénobiotiques qui sont les plus intéressantes sur le plan de la toxicité.
Les enzymes P450 métabolisant les xénobiotiques
Les enzymes P450 intervenant dans le métabolisme des produits exogènes et des médicaments sont presque toujours présentes dans les familles CYP1, CYP2, CYP3 et CYP4. Ces enzymes P450 catalysent de nombreuses réactions métaboliques, un seul cytochrome P450 étant souvent capable de métaboliser plusieurs composés différents. De plus, des enzymes P450 multiples peuvent métaboliser un composé sur différents sites. Un composé peut également être métabolisé au niveau d’un site unique par plusieurs P450, mais à des vitesses variables.
Les enzymes P450 métabolisant les médicaments sont dotés d’une propriété importante: beaucoup de ces gènes sont inductibles par les substances mêmes qui leur servent de substrat. Mais d’autres enzymes P450 sont induites par des molécules non substrat. Ce phénomène d’induction enzymatique est à la base de nombreuses interactions médicamenteuses, importantes du point de vue thérapeutique.
Bien que présentes dans de nombreux tissus, c’est dans le foie, principal site du métabolisme des médicaments, qu’on retrouve ces enzymes P450 à des taux relativement élevés. Certaines enzymes du P450 métabolisant les xénobiotiques possèdent une activité vis-à-vis de plusieurs substrats endogènes (acide arachidonique, par exemple). Cependant, on estime en général que la plupart des enzymes P450 métabolisant les xénobiotiques ne jouent pas un rôle physiologique important, bien qu’on ne l’ait pas encore établi expérimentalement. La rupture sélective de l’homozygotie, ou «knock-out», de certains gènes P450 métabolisant les xénobiotiques chez la souris permettra d’obtenir dans un avenir proche des informations sans équivoque sur le rôle physiologique des P450 métabolisant les xénobiotiques (pour une synthèse sur le ciblage des gènes, on peut se reporter à l’ouvrage de Capecchi, 1994).
Par opposition aux familles de P450 codant pour des enzymes impliquées principalement dans des processus physiologiques, les familles codant pour des enzymes P450 métabolisant les xénobiotiques manifestent une spécificité d’espèce marquée et comportent fréquemment de nombreux gènes actifs dans chaque sous-famille (Nelson et coll., 1993; Nebert et coll., 1991). Etant donné leur manque apparent de substrats physiologiques, il est possible que les enzymes P450 des familles CYP1, CYP2, CYP3 et CYP4, apparues il y a quelques centaines de millions d’années, aient évolué afin de détoxifier les produits chimiques étrangers rencontrés dans l’environnement et dans l’alimentation. En clair, l’évolution des P450 métabolisant les xénobiotiques se serait déroulée à une période bien antérieure à celle de la synthèse de la plupart des produits chimiques synthétiques auxquels l’humain est maintenant exposé. Les gènes de ces quatre familles ont vraisemblablement évolué et divergé selon les espèces en raison de leur exposition aux métabolites des végétaux au cours des 1,2 milliard d’années passées. Cette «guerre animal-plante» (Gonzalez et Nebert, 1990), comme on l’appelle de façon imagée, est un phénomène au cours duquel les plantes ont développé de nouveaux produits chimiques (phytoalexines) comme mécanisme de défense pour ne pas être ingérées par les animaux; les animaux ont réagi à ce changement en se dotant de nouveaux gènes P450 pour s’adapter à la diversification des substrats.
Les exemples décrits récemment de guerre chimique plante-insecte et plante-champignon impliquant une détoxification de substrats toxiques par les P450 donnent plus de poids à cette explication (Nebert, 1994). Nous consacrons les quelques pages qui suivent à plusieurs polymorphismes humains des enzymes P450 métabolisant les xénobiotiques dans lesquels les déterminants génétiques de la réponse toxique semblent avoir une importance capitale. Jusqu’à tout récemment, on soupçonnait l’existence d’un polymorphisme P450 lorsqu’on observait une variance inattendue dans la réponse de patients à un agent thérapeutique. C’est ainsi que plusieurs polymorphismes portent le nom du médicament qui a permis à l’origine de les identifier. Plus récemment, les efforts de recherche ont surtout porté sur l’identification précise des enzymes P450 impliquées dans le métabolisme de produits chimiques pour lesquels une variance est observée et sur la caractérisation exacte des gènes P450 concernés. Comme nous l’avons mentionné précédemment, l’activité mesurable d’une enzyme P450 vis-à-vis d’un produit chimique type porte le nom de phénotype. Les différences alléliques du gène P450 pour chaque individu sont appelées génotype P450. Avec l’étude de plus en plus minutieuse des gènes P450, la base moléculaire précise de la variance phénotypique précédemment décrite devient plus claire.
La sous-famille CYP1A
La sous-famille CYP1A comprend deux enzymes chez l’humain et tous les autres mammifères. Ces enzymes, appelées CYP1A1 et CYP1A2 dans la nomenclature officielle, revêtent un intérêt considérable, car elles participent à l’activation métabolique de nombreux procancérogènes et sont également induites par plusieurs composés posant des problèmes sur le plan toxicologique, dont la dioxine. Par exemple, la CYP1A1 active, en les métabolisant, de nombreux composés qu’on retrouve dans la fumée de cigarette. De même, la CYP1A2 active de nombreuses arylamines utilisées dans l’industrie des colorants et associées au cancer de la vessie. Elle active également le 4-(méthylnitrosamino)-1-(3-pyridyl)-1-butanone (NNK), une nitrosamine dérivée du tabac. Les CYP1A1 et CYP1A2, qui sont présentes à des taux très élevés dans les poumons des fumeurs de cigarettes, sont produites par les hydrocarbures polycycliques présents dans la fumée. Les niveaux d’activité de ces deux enzymes sont donc considérés comme des facteurs importants de la réaction individuelle à de nombreux produits chimiques potentiellement toxiques.
La sous-famille CYP1A a vu son intérêt toxicologique fortement augmenter à la suite d’un rapport paru en 1973 établissant une corrélation entre l’induction de la CYP1A1 chez les fumeurs et la prédisposition individuelle au cancer pulmonaire (Kellermann, Shaw et Luyten-Kellermann, 1973). De nombreux laboratoires se sont alors intéressés aux mécanismes moléculaires de l’induction des CYP1A1 et CYP1A2. Le processus d’induction se fait par l’intermédiaire d’une protéine appelée récepteur Ah à laquelle se fixent les dioxines et les produits chimiques structurellement apparentés. Le nom Ah est dû au caractère aryl hydrocarboné de nombreux inducteurs du CYP1A. Précisons que, selon la souche de souris, les différences au niveau du gène codant pour le récepteur Ah entraînent des disparités notables dans la toxicité d’un produit chimique et dans la réponse à cette toxicité. Il semble exister chez l’humain un polymorphisme du gène du récepteur Ah: ainsi, environ un dixième de la population présente une induction importante du CYP1A1 susceptible de l’exposer à un plus grand risque de certains cancers induits chimiquement que les neuf autres dixièmes de la population. Le rôle que joue le récepteur Ah dans le contrôle des enzymes de la sous-famille du CYP1A et dans la réponse humaine à une exposition chimique a fait l’objet de plusieurs études bibliographiques récentes (Nebert, Petersen et Puga, 1991; Nebert, Puga et Vasiliou, 1993).
Existe-t-il d’autres polymorphismes pouvant déterminer le taux protéique de CYP1A dans la cellule? Un polymorphisme du gène CYP1A1, identifié chez les Japonais fumeurs de cigarettes, semble avoir une incidence sur le risque de cancer pulmonaire, bien que ce même polymorphisme ne paraisse pas exercer d’influence sur ce risque dans d’autres groupes ethniques (Nebert et McKinnon, 1994).
CYP2C19
On sait depuis longtemps que les individus ne métabolisent pas tous à la même vitesse le médicament anticonvulsivant (S)-méphénytoïne (Guengerich, 1989). A cause d’une déficience, entre 2 et 5% des Caucasiens et jusqu’à 25% des Asiatiques présentent un plus grand risque de réaction toxique à ce médicament. On sait depuis longtemps aussi que cette anomalie enzymatique est due à un membre de la sous-famille CYP2C; cependant, la base moléculaire précise de cette déficience a donné lieu à de nombreuses controverses, la sous-famille CYP2C ne contenant pas moins de six gènes. Récemment, on a pu démontrer que la principale cause de cette déficience était la mutation d’une seule base au niveau du gène CYP2C19 (Goldstein et de Morais, 1994). Un simple test ADN, par réaction en chaîne de la polymérase, a également été mis au point pour identifier rapidement cette mutation dans des populations humaines (Goldstein et de Morais, 1994).
CYP2D6
La variation sans doute la mieux caractérisée d’un gène P450 est celle du CYP2D6. Plus d’une dizaine de cas de mutations, de réarrangements et de délétions touchant ce gène ont été décrits (Meyer, 1994). L’existence de ce polymorphisme a été soupçonnée pour la première fois il y a une vingtaine d’années lorsqu’on s’est aperçu que les patients traités par la débrisoquine, médicament antihypertenseur, ne présentaient pas tous la même réponse clinique. C’est de cette époque que date l’expression polymorphisme de la débrisoquine pour désigner les altérations du gène CYP2D6 à l’origine des variations de l’activité enzymatique.
Avant les études sur l’ADN, on classait les individus en métaboliseurs lents ou rapides de la débrisoquine en se fondant sur les concentrations de métabolites dans les échantillons urinaires. On sait maintenant que les altérations du gène CYP2D6 permettent non seulement de distinguer les individus qui métabolisent lentement ou rapidement la débrisoquine, mais aussi ceux qui ont un métabolisme ultrarapide. La plupart des altérations du gène CYP2D6 sont associées à une déficience partielle ou totale de l’enzyme; cependant, on a constaté récemment qu’il existait des sujets de deux familles possédant de multiples copies fonctionnelles du gène CYP2D6, altération à l’origine d’un métabolisme ultrarapide des substrats du CYP2D6 (Meyer, 1994). Cette observation remarquable donne un nouvel éclairage à la question du large spectre de l’activité du CYP2D6 précédemment constatée dans des études de population. Les altérations de fonction du CYP2D6 revêtent un intérêt tout particulier, étant donné que plus de 30 médicaments prescrits de façon courante sont métabolisés par cette enzyme. Le statut individuel du CYP2D6 est donc un facteur déterminant des réponses thérapeutiques et toxiques après administration d’une médication. Un débat récent a d’ailleurs eu lieu sur la nécessité de prendre en considération ce statut pour l’administration en toute sécurité de médicaments psychiatriques ou cardio-vasculaires à des patients.
Le rôle du polymorphisme du CYP2D6 dans la prédisposition individuelle à des maladies humaines telles que le cancer pulmonaire ou la maladie de Parkinson a fait l’objet d’études approfondies (Nebert et McKinnon, 1994; Meyer, 1994). Bien qu’il soit difficile d’en tirer des conclusions étant donné la diversité des protocoles employés, la majorité des études semblent indiquer une association entre les métaboliseurs rapides de la débrisoquine et le cancer pulmonaire. Pour l’heure, les raisons d’une telle association ne sont pas claires. Néanmoins, on a démontré que l’enzyme CYP2D6 métabolise la NNK, nitrosamine produite à partir du tabac.
L’amélioration des techniques d’étude de l’ADN permettra, tout en garantissant une évaluation plus précise du statut du CYP2D6, de préciser la relation entre le CYP2D6 et le risque pathogène. Alors que les métaboliseurs rapides paraissent plus sensibles à la survenue d’un cancer pulmonaire, pour une raison encore inconnue, les métaboliseurs lents semblent présenter une plus grande sensibilité à la maladie de Parkinson. Bien qu’il soit difficile de comparer ces études, il apparaît que les sujets métaboliseurs lents présentent de 2 à 2,5 fois plus de risques de développer une maladie de Parkinson.
Le CYP2E1
Le gène CYP2E1 code pour une enzyme qui métabolise de nombreux produits chimiques, en particulier des médicaments et de nombreux cancérogènes de faible poids moléculaire. Cette enzyme, fortement inductible par l’alcool, peut jouer un rôle dans les lésions hépatiques produites par des produits chimiques tels que le chloroforme, le chlorure de vinyle ou le tétrachlorure de carbone. On la trouve surtout dans le foie, à un taux qui fluctue sensiblement d’un individu à l’autre. L’étude approfondie du gène CYP2E1 a permis d’identifier plusieurs polymorphismes (Nebert et McKinnon, 1994). La relation entre la présence de certaines variations structurelles du gène CYP2E1 et un risque apparemment plus faible de cancer pulmonaire a été établie dans certaines études; cependant, l’existence de différences interethniques marquées exige d’être approfondie pour pouvoir confirmer cette relation éventuelle.
La sous-famille CYP3A
Chez l’humain, quatre enzymes ont été identifiées dans la sous-famille CYP3A en raison de la similitude de leur séquence en acides aminés. Les enzymes du CYP3A métabolisent de nombreux médicaments couramment prescrits comme l’érythromycine et la cyclosporine. L’aflatoxine B1, contaminant cancérogène des produits alimentaires, est également un substrat du CYP3A. L’un des membres de la sous-famille humaine du CYP3A, appelé CYP3A4, est le principal composant de la famille des cytochromes P450 du foie humain; il est également présent au niveau du tractus gastro-intestinal. Comme c’est le cas pour de nombreuses enzymes du cytochrome P450, le taux de CYP3A4 est très variable selon les individus. Une seconde enzyme, CYP3A5, est présente dans le foie de 25% seulement des individus; la cause génétique de ces variations est inconnue. L’importance de la variabilité du CYP3A4 ou du CYP3A5 comme facteur génétique déterminant d’une réponse toxique n’a pas encore été établie (Nebert et McKinnon, 1994).
Les polymorphismes autres que le P450
De nombreux polymorphismes existent également dans d’autres superfamilles d’enzymes métabolisant les xénobiotiques (glutathion transférases, UDP glucuronosyltransférases, p-oxonases, déshydrogénases, N-acétyltransférases ou mono-oxygénases à flavine, etc.). Etant donné que la toxicité finale d’un intermédiaire généré par le cytochrome P450 dépend de l’efficacité des réactions ultérieures de détoxification lors de la phase II, le rôle combiné des multiples polymorphismes enzymatiques revêt une importance capitale pour la prédisposition aux maladies provoquées par des produits chimiques. L’équilibre métabolique entre les réactions de phase I et de phase II (voir figure 33.4) joue donc selon toute vraisemblance un rôle clé dans la survenue de ce type de pathologies chez l’humain et constitue le facteur génétique déterminant d’une réponse toxique.
Le polymorphisme du gène GSTM1
Un exemple bien étudié de polymorphisme d’une enzyme de phase II est celui d’un membre de la superfamille des enzymes glutathion S-transférases, la GST mu ou GSTM1. Cette enzyme particulière a un intérêt toxicologique considérable, puisqu’elle paraît participer à la détoxification des métabolites toxiques produits par l’enzyme CYP1A1 à partir de la fumée de cigarette. Le polymorphisme du gène de la glutathion transférase consiste en une absence totale d’enzyme fonctionnelle chez la moitié des Caucasiens. Cette absence d’enzyme de phase II semble associée à une prédisposition accrue au cancer pulmonaire. En groupant les individus en fonction des variants du gène CYP1A1 et de la délétion ou de la présence d’un gène GSTM1 fonctionnel, on a pu démontrer que le risque de cancer pulmonaire dû au tabagisme varie considérablement (Kawajiri, Watanabe et Hayashi, 1994). En particulier, les sujets présentant une altération rare du gène CYP1A1, associée à l’absence de gène GSTM1, ont un risque accru (neuf fois plus élevé) de développer un cancer pulmonaire lorsqu’ils sont exposés à une concentration pourtant relativement faible de fumée de cigarette. Précisons que des différences interethniques semblent intervenir dans ces gènes variants et qu’il serait opportun d’effectuer des études complémentaires pour préciser le rôle de telles altérations en pathologie (Kalow, 1962; Nebert et McKinnon, 1994; Kawajiri, Watanabe et Hayashi, 1994).
L’effet synergique de deux ou de plusieurs polymorphismes sur la réponse toxique
La réponse toxique à un agent environnemental peut être très fortement augmentée lorsqu’un même individu présente deux anomalies pharmacogénétiques comme la combinaison d’un polymorphisme de la N-acétyltransférase (NAT2) et d’un polymorphisme de la glucose-6-phosphate déshydrogénase (G6PD).
L’exposition professionnelle aux arylamines constitue un risque important de cancer de la vessie. Depuis les études remarquables de Cartwright en 1954, on sait que le statut des N-acétyleurs est un facteur étiologique du cancer de la vessie induit par les colorants azoïques. Il existe une corrélation très significative entre le phénotype acétyleur lent, l’existence de cancer de la vessie et le degré d’invasion de ce cancer dans la paroi vésicale. A l’inverse, on a pu mettre en évidence une association significative entre le phénotype acétyleur rapide et l’incidence de carcinome côlo-rectal. Les gènes des N-acétyltransférases (NAT1, NAT2) ont été clonés et séquencés et, grâce aux techniques ADN, on est maintenant en mesure de détecter plus d’une dizaine de variants alléliques rendant compte du phénotype acétyleur lent. Le gène NAT2 est un gène polymorphe, surtout responsable de la variabilité de la réponse toxique aux produits chimiques présents dans l’environnement (Weber, 1987; Grant, 1993).
La glucose-6-phosphate déshydrogénase (G6PD) est une enzyme critique pour la production et le maintien du NADPH, sa faible activité ou son absence d’activité pouvant conduire à une hémolyse sévère induite par des médicaments ou des xénobiotiques due à une mauvaise concentration du glutathion réduit (GSH) dans les hématies. Le déficit en G6PD affecte au moins 300 millions de personnes dans le monde. Plus de 10% des Afro-Américains de sexe masculin présentent le phénotype le moins sévère, le «type méditerranéen» le plus sévère se retrouvant à une fréquence élevée (un sujet sur trois) dans certaines communautés sardes. Le gène G6PD a été cloné et localisé sur le chromosome X et de nombreuses mutations ponctuelles expliquent qu’on constate un tel degré d’hétérogénéité phénotypique chez les individus souffrant d’un tel déficit (Beutler, 1992).
Le thiozalsulfone, médicament de type sulfarylamine, est à l’origine d’une anémie hémolytique qui se manifeste par distribution bimodale dans la population à qui on l’administre. Lorsqu’ils sont traités par certains médicaments, les individus présentant à la fois un déficit en G6PD et le phénotype acétyleur lent sont plus affectés que ceux ayant seulement une carence en G6PD ou un phénotype acétyleur lent. Les acétyleurs lents déficitaires en G6PD sont au moins 40 fois plus sensibles à l’hémolyse induite par le thiozalsulfone que les acétyleurs rapides à statut normal en G6PD.
L’effet des polymorphismes génétiques sur l’évaluation d’une exposition
Pour assurer l’évaluation de l’exposition et la surveillance biologique (voir figure 33.2), il faut aussi disposer d’informations sur la constitution génétique de chaque individu. Pour une même exposition à un produit chimique dangereux, le taux des adduits à l’hémoglobine (ou d’autres marqueurs biologiques) peut varier de deux à trois ordres de grandeur d’un individu à l’autre, selon l’empreinte métabolique individuelle.
Des études semblables de pharmacogénétique ont été effectuées chez des travailleurs de l’industrie chimique en Allemagne (voir tableau 33.3). Par rapport aux autres phénotypes pharmaco-génétiques combinés possibles, les adduits à l’hémoglobine parmi les sujets exposés à l’aniline et à l’acétanilide sont de loin les plus élevés chez les acétyleurs lents présentant un déficit en G6PD. Cette étude a d’importantes implications sur le plan de l’évaluation de l’exposition. Il peut en effet arriver, compte tenu de la prédisposition génétique de chacun, que l’on sous-estime de deux ou de plusieurs ordres de grandeur l’exposition que subissent réellement deux individus exposés à une même concentration de produit chimique dangereux sur leur lieu de travail (si l’on en juge par des marqueurs biologiques tels que les adduits à l’hémoglobine). De même, le risque résultant d’un effet nocif pour la santé peut varier de deux ou plusieurs ordres de grandeur.
Tableau 33.3 Adduits à l'hémoglobine chez des travailleurs exposés à l'aniline et à l'acétanilide
| Type d’acétyleur | Déficit en G6PD | |||||
| Rapide | Lent | Non | Oui | Adduits à Hb | ||
| + | + | 2 | ||||
| + | + | 30 | ||||
| + | + | 20 | ||||
| + | + | 100 | ||||
| Source : d’après Lewalter et Korallus, 1985. | ||||||
Les différences génétiques au niveau de la liaison et du métabolisme
Les observations que nous venons de faire pour le métabolisme valent aussi pour la liaison. Les différences héréditaires qui peuvent exister au niveau de la liaison d’agents environnementaux affectent de façon sensible la réponse toxique. Ainsi, les différences au niveau du gène cdm de la souris modifient fortement la sensibilité individuelle à la nécrose testiculaire induite par le cadmium (Taylor, Heiniger et Meier, 1973). Les différences d’affinité de liaison au récepteur Ah ont probablement une incidence sur la toxicité en cas d’expositions à la dioxine et sur la survenue du cancer (Nebert, Petersen et Puga, 1991; Nebert, Puga et Vasiliou, 1993).
La figure 33.6 résume le rôle du métabolisme et de la liaison dans la toxicité et le cancer. Les agents toxiques, tels qu’ils sont présents dans l’environnement, ou en raison de leur métabolisme ou de leur liaison, produisent des effets soit par voie génotoxique (apparition de lésions au niveau de l’ADN), soit par voie non génotoxique (absence de mutagenèse ou de lésions au niveau de l’ADN). Fait intéressant, on a établi récemment que les agents génotoxiques classiques peuvent agir par l’intermédiaire d’un signal de transduction non génotoxique dépendant du glutathion réduit (GSH), initié au niveau de la surface cellulaire ou dans son voisinage en absence d’ADN et hors du noyau cellulaire (Devary et coll., 1993). Cependant, les différences génétiques de métabolisme et de liaison restent les facteurs déterminants dans la façon dont les individus réagissent aux toxiques.
Figure 33.6 Voies générales de la toxicité
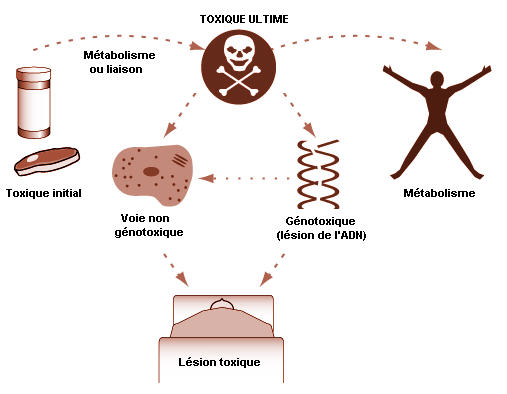
Le rôle des enzymes métabolisant les médicaments dans le fonctionnement cellulaire
Les variations d’origine génétique du fonctionnement des enzymes métabolisant les médicaments revêtent une importance capitale dans la réponse individuelle aux produits chimiques. Ces enzymes sont essentielles pour comprendre le devenir et l’évolution d’un produit chimique étranger après une exposition.
Comme le montre la figure 33.6, l’importance des enzymes métabolisant les médicaments dans la sensibilité individuelle à l’exposition à un produit chimique est en fait beaucoup plus complexe que ne le laisse penser le présent exposé sur les xénobiotiques. Ainsi, au cours des deux dernières décennies, le rôle des mécanismes génotoxiques (mesure des adduits à l’ADN et aux protéines) est apparu clairement. On peut toutefois se demander si les mécanismes non génotoxiques ne sont pas aussi importants que les mécanismes génotoxiques dans la survenue des réponses toxiques.
Le rôle physiologique que de nombreuses enzymes métabolisant les médicaments jouent dans le métabolisme des xénobiotiques n’a pas, rappelons-le, été complètement élucidé. Selon Nebert (1994), les enzymes du métabolisme des médicaments qui sont présentes sur notre planète depuis plus de 3,5 milliards d’années étaient responsables à l’origine (et le sont encore, pour une part essentielle) de la régulation des niveaux cellulaires de nombreux ligands non peptidiques importants pour l’activation de la transcription de gènes en rapport avec la croissance, la différenciation, l’apoptose, l’homéostasie et les fonctions neuroendocriniennes. De plus, la toxicité de la plupart, si ce n’est de tous les agents environnementaux, s’exerce par l’intermédiaire d’une action agoniste ou antagoniste sur ces signaux de transduction (Nebert, 1994). Si l’on en croit cette hypothèse, la variabilité génétique des enzymes métabolisant les médicaments peut avoir des effets extrêmement graves sur de nombreux processus biochimiques essentiels pour la cellule et être de ce fait à l’origine d’importantes différences dans la réponse toxique. Le même scénario pourrait également expliquer de nombreuses réactions indésirables idiosyncrasiques rencontrées chez des patients prenant des médicaments prescrits de façon courante.
Conclusion
La dernière décennie a été marquée par des progrès remarquables dans la compréhension des bases génétiques de la réponse individuelle aux produits chimiques présents dans les médicaments, les aliments et les polluants environnementaux. Les enzymes métabolisant les médicaments ont une profonde influence sur la manière dont les individus réagissent aux produits chimiques. L’évolution de nos connaissances sur la multiplicité de ce type d’enzymes aidant, nous sommes chaque jour un peu mieux en mesure d’évaluer le risque toxique de nombreux médicaments et produits chimiques environnementaux. C’est le cas en particulier pour l’isoforme CYP2D6 du cytochrome P450. A l’aide de techniques ADN relativement simples, il est possible de prévoir la réponse probable à n’importe quel médicament métabolisé par cette enzyme; cette avancée est le gage d’une utilisation plus sûre de thérapeutiques indispensables, bien que potentiellement toxiques.
Au cours des années à venir, nous allons sans doute parvenir à identifier une multitude d’autres polymorphismes (phénotypes) impliquant des enzymes du métabolisme des médicaments. Ces informations seront le fruit de la mise en œuvre de techniques ADN améliorées, peu invasives, permettant d’identifier les génotypes dans la population humaine.
De telles études devraient être particulièrement précieuses pour évaluer le rôle des produits chimiques dans de nombreuses maladies environnementales d’origine encore inconnue. La prise en compte des multiples polymorphismes touchant les enzymes métabolisant les médicaments, agissant de manière combinée (voir tableau 33.3), représente à n’en pas douter un domaine de recherche particulièrement fertile. De telles études clarifieront la responsabilité des produits chimiques dans le développement du cancer. Au niveau collectif, cette information devrait permettre de prodiguer des conseils personnalisés aux individus afin de leur éviter de s’exposer aux produits chimiques susceptibles d’agir sur eux. Ce type d’information et de conseils, qui relève de la toxicologie préventive, nous aidera sans doute à faire face avec succès au nombre sans cesse croissant de produits chimiques auxquels nous sommes exposés.
| Algérie mon beau pays | |